

Движението е живот. Тази фраза може да се интерпретира и като мотивация да се движим напред, да не стоим на едно място и да постигаме желаното, и като констатация на факта, че практически всички живи същества прекарват по-голямата част от живота си в движение. За да не завършват нашите движения и премества на пространството всеки път с удари по челото и счупени малки пръсти, нашият мозък използва запазени "карти" на околната среда, които неосъзнато изплуват в момента на нашето движение. Въпреки това, има мнение, че мозъкът прилага тези карти не отстрани, така да се каже, а поставяйки човека на тази карта и събирайки данни визуално от първо лице. Учените от Бостонския университет решиха да докажат тази теория, провеждайки серия от практически опити с лабораторни мишки. Как наистина мозъкът се ориентира в пространството, какви клетки се задействат и каква роля играе това изследване за бъдещите автономни автомобили и роботи? За това ще научим от доклада на изследователската група. Да тръгваме.
Основи на изследването
И така, установеният преди много години факт е, че основната част на мозъка, отговорна за ориентацията в пространството, е хипокампусът.
Хипокампусът участва в много различни процеси: формиране на емоции, преобразуване на краткосрочната памет в дългосрочна и формиране на пространствена памет. Именно последната е източникът на онези "карти", които нашият мозък активира в нужния момент за по-ефективна ориентация в пространството. С други думи, в хипокампуса се съ хранят тримерни невропни модели на пространството, в което се намира собственикът на мозъка.
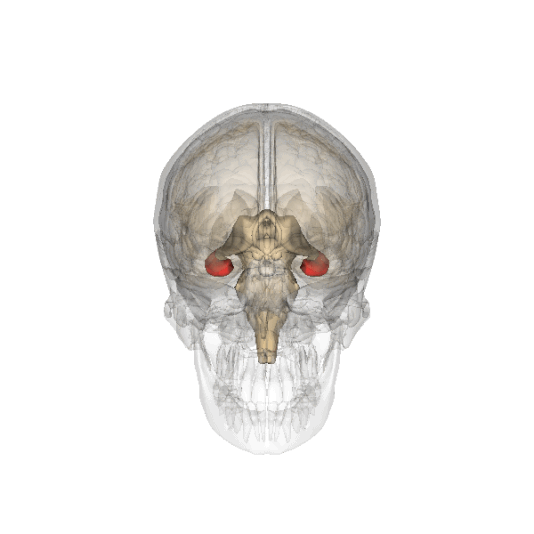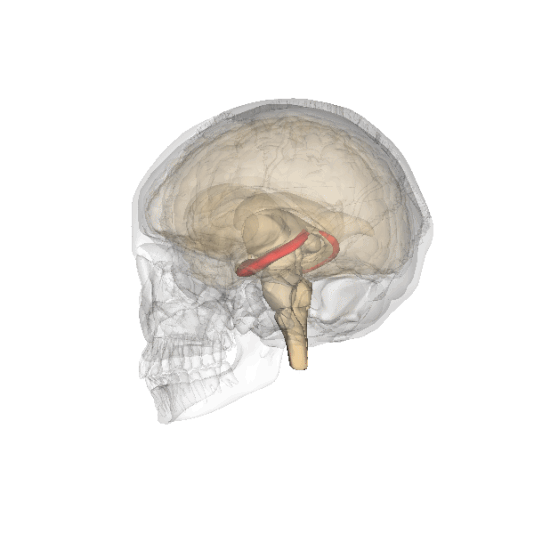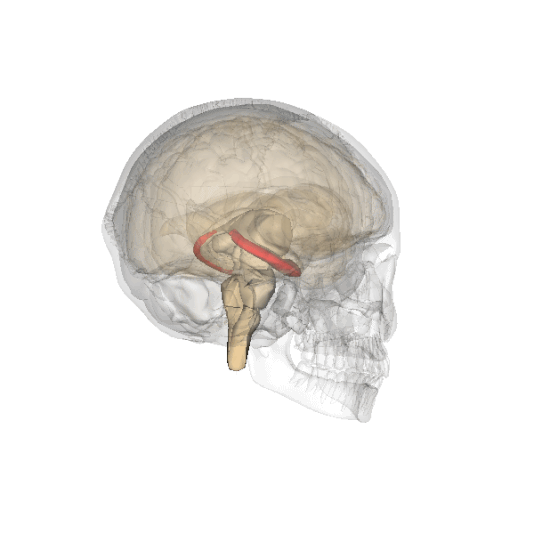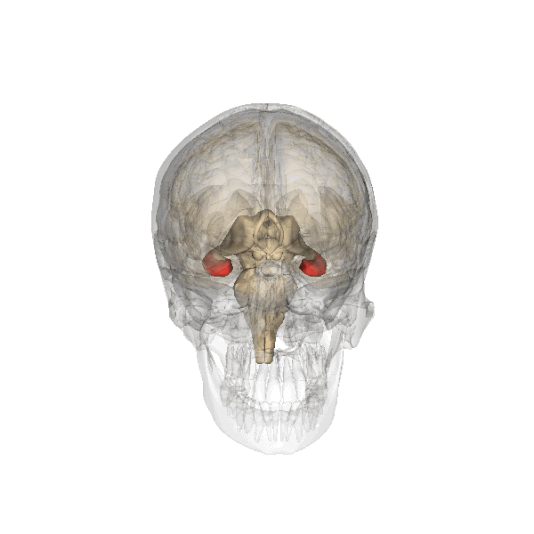
Хипокампус
Съществува теория, която твърди, че между фактическата навигация и картите от хипокампуса има междинен етап — преобразуване на тези карти в изглед от първо лице. Тоест, човек се опитва да разбере къде какво е разположено не общо (както виждаме на истинските карти), а къде какво ще бъде разположено относно него самия (както функцията "разгледай улиците" в Google Maps).
Авторите на разглеждания от нас труд подчертават следното: Когнитивните карти на околната среда се кодирани в хипокампалната формация в аллоцентрична система, но моториката (самите движения) е представена в егоцентрична система.
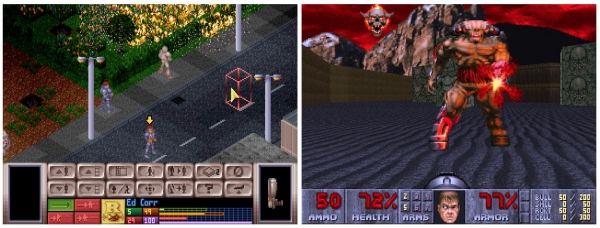
UFO: Enemy Unknown (аллоцентрична система) и DOOM (егоцентрична система).
Разликата между аллоцентричната и егоцентричната система напомня разликата между игрите от трето лице (или от странична, горна и т.н. гледна точка) и игрите от първо лице. В първия случай за нас е важно самото околно пространство, а във втория — нашето положение спрямо това пространство. Така аллоцентричните навигационни планове трябва да бъдат преобразувани в егоцентрична система за фактическа реализация, т.е. за движение в пространството.
Изследователите смятат, че именно дорсалмедийната стриатум (DMS)* играе ключова роля в описания по-горе процес.
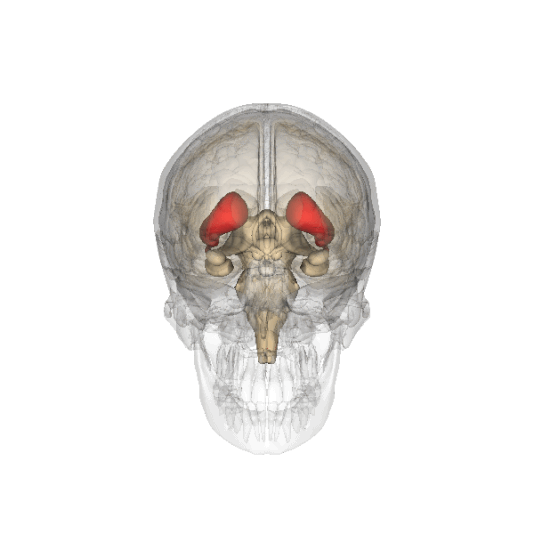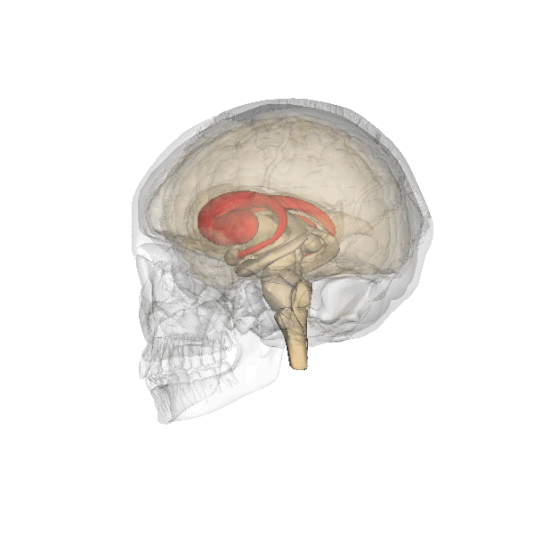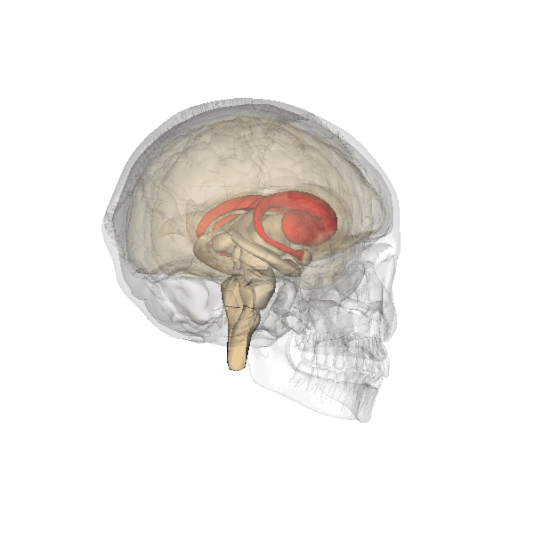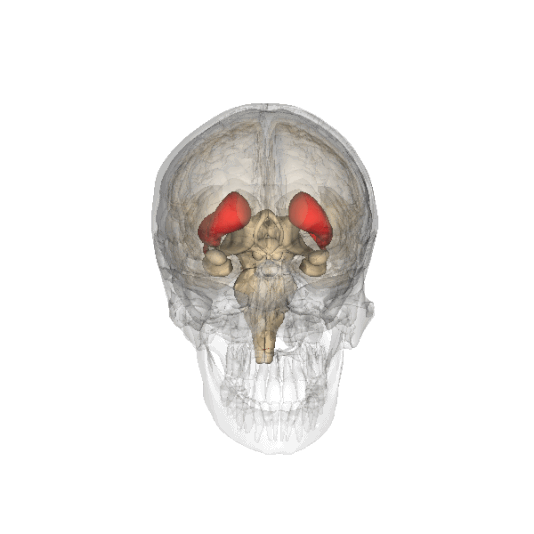
Полосатото тяло на човешкия мозък.
Стриатум* е част от мозъка, която принадлежи към базалните ядра; стриатумът участва в регулирането на мускулния тонус, вътрешните органи и поведенческите реакции; стриатумът също така се нарича "полосато тяло" поради структурата си от редуващи се ивици сиво и бяло вещество.
DMS демонстрира неуронни отговори, свързани с вземане на решения и изпълнение на действия относно навигацията в пространството, затова този участък от мозъка трябва да бъде изучаван по-подробно.
Резултати от изследването
За да се определи наличието/отсъствието на егоцентрична пространствена информация в полосатото тяло (DMS), на 4 мъжки плъха бяха имплантирани до 16 тетроди (специални електроди, свързани с необходимите участъци от мозъка), насочени към DMS (1а).
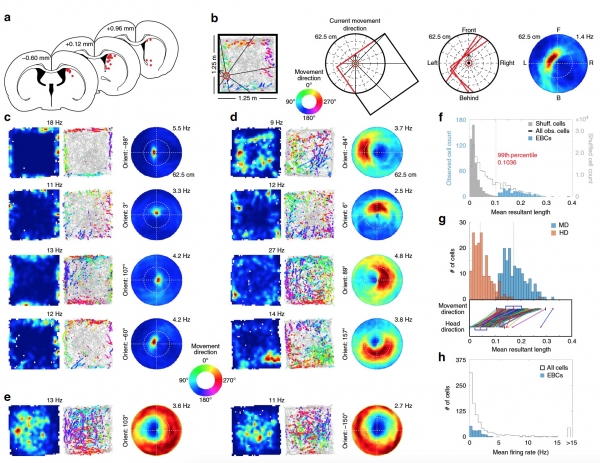
Изображение №1: реакция на клетките на полосатото тяло на границите на околната среда в егоцентрична система за отчитане.
Пояснения към изображение №1:и — точки на разположение на тетродите;
b — егоцентрична карта на границите;
с — аллоцентрични пространствени карти (4 квадрата отляво), графики на траектории с цветово кодиранe на местоположенията на пиковите реакции на клетките относно положението на тялото и егоцентрични карти (4 квадрата отдясно) на базата на реакцията на клетките EBC при различни ориентации и разстояния между плъха и стената;
d — както и на 1с, но за EBC с предпочитани разстояния, отдалечени от животното;
e — както и на 1с, но за две обратни EBC;
f — разпределение на средната резултантна дължина за наблюдаваните клетки;
g — разпределение на средната резултантна дължина за EBC, използвайки посоката на движение и посоката на главата;
h — разпределение на средната реакция на клетките (всички и EBC).
Бяха проведени 44 експеримента, когато плъховете събираха случайно разпръсната храна в познато пространство (отворено, не в лабиринт). В резултат бяха регистрирани 939 клетки. От събраните данни беше установено наличието на 31 клетка с посока на главата (HDC), но само малка част от клетките, а именно 19, имаха алоцентрични пространствени корелати. Активността на тези клетки, ограничена от периметъра на околната среда, се наблюдаваше само по време на движението на плъха entlang стените на тестовата камера, което предполага егосентрична схема за кодиране на границите на пространството.
За оценка на възможностите на такова егосентрично представяне на база пиковите показатели на активност на клетките бяха създадени егосентрични карти на границите (1b), които илюстрират ориентацията и разстоянието на границите относно посоката на движение на плъха, а не положението на главата му (сравнение на 1g).
18% от регистрираните клетки (171 от 939) демонстрираха значителна реакция, когато границата на камерата зае определено положение и ориентация спрямо подопитния (1f). Учените ги нарекоха клетки на егосентричните граници (EBC — egocentric boundary cells). Броят на такива клетки при подопитните варираше от 15 до 70 с среден показател 42.75 (1c, 1d).
Сред клетките на егосентричните граници имаше такива, чиито активност намаляваше в отговор на границите на камерата. Бяха намерени общо 49 и ги нарекоха обратни EBC (iEBC). Средният показател за реакцията на клетките (техният потенциал за действие) на EBC и iEBC беше доста нисък — 1.26 ± 0.09 Hz (1h).
Популацията на клетките EBC реагира на всички варианти на ориентация и положение на границата на камерата спрямо подопитния, но разпределението на предпочитаната ориентация е бимодално с пикове, разположени на 180° един срещу друг от двете страни на животното (-68° и 112°), леко изместено от перпендикуляра на дългата ос на животното с 22° (2d).
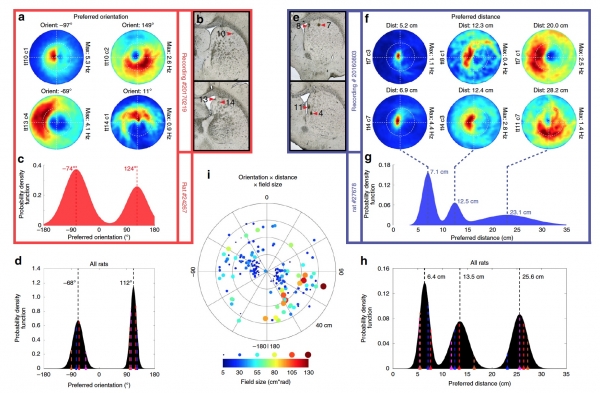
Изображение №2: предпочитана ориентация и разстояние за реакцията на егоцентричните клетки на границите (EBC).
Обяснения към изображение №2:a — егоцентрични карти на границите за четири EBC, изследвани едновременно с различни предпочитани ориентации, посочени над всяка графика;
b — позицията на тетродите в съответствие с клетките от 2а (числото посочва номера на тетродите);
с — разпределение на вероятностите на предпочитаните ориентации за всички EBC на една мишка;
d — разпределение на вероятностите на предпочитаните ориентации за EBC на всички мишки;
е — позицията на тетродите за клетките, показани на 2f;
f — егоцентрични карти на границите за шест EBC, записани едновременно с различни предпочитани разстояния, посочени над всяка графика;
g — разпределение на вероятностите на предпочитаното разстояние за всички EBC на една мишка;
h — разпределение на вероятностите на предпочитаното разстояние за EBC на всички мишки;
i — полярен график на предпочитаното разстояние и предпочитаната ориентация за всички EBC, като размерът на пространството е представен с цвят и диаметър на точките.
Разпределението на предпочитаното разстояние до границата съдържаше три пика: 6.4, 13.5 и 25.6 см, показващи наличието на три различни предпочитани разстояния между EBC (2f—2h), които могат да бъдат важни за стратегията за йерархично навигационно търсене. Размерът на рецептивните полета на EBC нарастваше в зависимост от предпочитаното разстояние (2i), което показва, че точността на егоцентричното представяне на границите нараства с намаляването на разстоянието между стената и обекта.
Както в предпочитаната ориентация, така и в разстоянието нямаше ясна топография, тъй като активните EBC на обекта с различна ориентация и разстояние спрямо стената се появяваха на един и същ тетрод (2a, 2b, 2e и 2f).
Също така беше установено, че EBC последователно реагират на границите на пространството (стените на камерата) при всякакви варианти на тестовите камери. За да потвърдят, че EBC реагират на локалните граници на камерата, а не на нейните дистални характеристики, учените "преместиха" позицията на камерата на 45° и направиха някои стени черни, което я направи различна от използваната в предишните тестове.
Данните бяха събрани както в обичайната тестова камера, така и в завъртяната. Въпреки промяната в тестовата камера, всички предпочитани ориентации и разстояния спрямо стените на EBC останаха същите.
С оглед на важността на ъглите, беше разгледана възможността EBC уникално да кодира тези локални атрибути на околната среда. Чрез анализ на разликата в реакцията в близост до ъглите и реакцията близо до средата на стената, беше идентифицирано подмножество клетки EBC (n = 16; 9,4%), които проявяват повишена реакция на ъглите.
Следователно можем да направим междинен извод, че клетките EBC реагират отлично на периметъра на камерата, т.е. на стените на тестовата камера и на нейните ъгли.
След това учените провериха дали реакцията на клетките EBC към откритото пространство (тестова арена без лабиринт, т.е. само 4 стени) е еднаква при различни варианти на площта на тестовото помещение. Бяха проведени 3 опита, при които дължината на стените се различаваше от предходните с 50 см.
Независимо от размерите на тестовата камера, EBC реагираха на нейните граници на едно и също разстояние и ориентация спрямо обекта. Това показва, че няма скалиране на реакцията в зависимост от размера на околната среда.
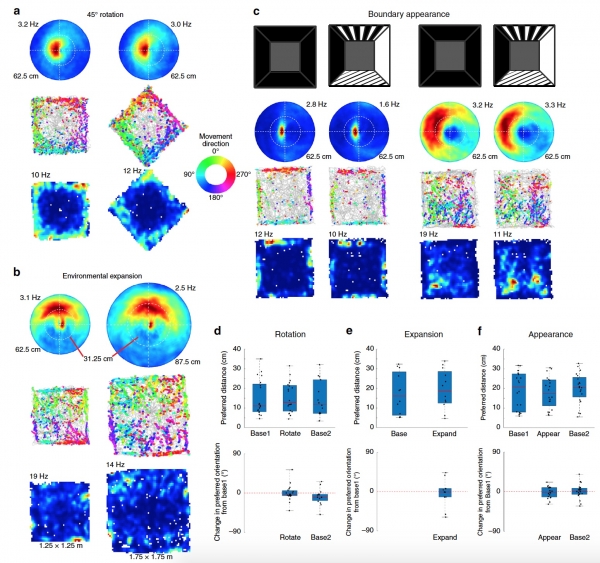
Изображение №3: стабилна реакция на клетките EBC на границите на пространството.
Обяснения към изображение №3:и — егоцентристи карти на EBC при нормални условия (вляво) и при завъртане на тестовата камера на 45° (вдясно);
b — егоцентриски карти на EBC за камера с размер 1.25 х 1.25 м (вляво) и за увеличена камера 1.75 х 1.75 м (вдясно);
с — егоцентриски карти на EBC при обикновени черни стени на камерата (вляво) и при шарени стени (вдясно);
d—f — графики на предпочитано разстояние (горе) и промяна на предпочитаната ориентация спрямо базовата линия (долу).
Тъй като лентовото тяло получава информация за околната среда от няколко области на зрителната кора на мозъка, учените също провериха дали външният вид на стените (3c) на камерата влияе на реакцията на клетките EBC.
Промяната на външния вид на границите на пространството не оказа никакво влияние на реакцията на клетките EBC и на необходимото за реакция разстояние и ориентация спрямо обекта.
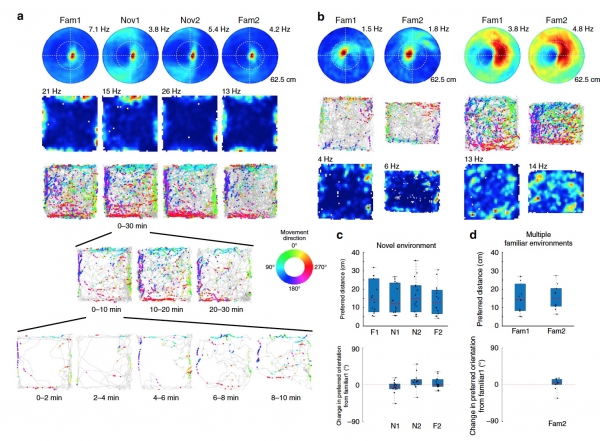
Изображение №4: стабилност на реакцията на клетките EBC независимо от околната среда.
Обяснение на изображение №4:и — егоцентрични карти за EBC в позната (вляво) и нова (вдясно) среда;
b — егоцентрични карти за EBC, получени в една и съща среда, но с времеви интервал;
с — графики на предпочитано разстояние (в горната част) и промяна на предпочитана ориентация спрямо базовата линия (в долната част) за нови (непознати) среди;
d — графики на предпочитано разстояние (в горната част) и промяна на предпочитана ориентация спрямо базовата линия (в долната част) за изучавани преди (познати) среди.
Също така беше установено, че реакцията на клетките EBC, както и необходимата за това ориентация и разстояние спрямо субекта, не се променят с времето.
Обаче този "временен" тест беше проведен в една и съща тестова камера. Необходимо беше също да се провери каква е разликата между реакцията на EBC в известни условия и в нови. За целта бяха проведени няколко опита, при които плъховете изследваха камерата, която вече познават от предишни тестове, а след това — нови камери с открито пространство.
Както вече се досетихте, реакцията на клетките EBC + нужната ориентация/разстояние останаха непроменени в новите камери (4a, 4c).
Така че, реакцията на EBC осигурява стабилно представление на границите на околната среда спрямо субекта във всички типове тази среда, независимо от външния вид на стените, площта на тестовата камера, нейното местоположение и времето, прекарано от субекта в камерата.
За по-подробно запознаване с нюансите на изследването, препоръчвам да се запознаете с и към него.
Епилог
В настоящата работа учените успяха на практика да потвърдят теорията за егоцентричното представяне на околната среда, което е от изключителна важност за ориентиране в пространството. Те доказаха, че между аллоцентричното пространствено представяне и фактическото действие има междинен процес, в който участват определени клетки на лента, наречени клетки с егоцентрични граници (EBC). Също така беше установено, че EBC са повече свързани с управлението на движението на цялото тяло, а не само на главата на субектите.
Целта на това изследване беше да се определи пълният механизъм на ориентация в пространството, всички негови компоненти и променливи. Учените вярват, че този труд ще помогне за усъвършенстване на навигационните технологии за автономни автомобили и роботи, които ще могат да разбират заобикалящото ги пространство, както ние го правим. Изследователите са изключително доволни от резултатите от своята работа, които дават основания да продължат да изследват взаимовръзката между определени участъци от мозъка и начина, по който се извършва навигацията в пространството.
Благодаря за вниманието, оставайте любопитни и приятна работна седмица на всички, приятели! 🙂
Благодарим, че останахте с нас. Харесвате ли нашите статии? Искате ли да виждате повече интересни материали? Подкрепете ни, като направите поръчка или ни препоръчате на познати, 30% отстъпка за потребителите на Хабра за уникален аналог на entry-level сървъри, създаден от нас за вас: (налични опции с RAID1 и RAID10, до 24 ядра и до 40GB DDR4).
Dell R730xd два пъти по-евтин? Само при нас в Нидерландия! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — от $99! Четете за това
Източник: habr.com
