

Verden omkring os er fyldt med information af forskellig art, som vores hjerne konstant bearbejder. Den modtager denne information gennem sanseorganer, hvor hver især er ansvarlig for sin andel af signaler: øjne (syn), tunge (smag), næse (lugt), hud (følelse), vestibulært apparat (balance, position i rummet og vægtfornemmelse) og ører (lyde). Når den samler signaler fra alle disse organer, kan vores hjerne danne et præcist billede af miljøet omkring os. Men langt fra alle aspekter af behandling af eksterne signaler er kendte for os. En af disse hemmeligheder er mekanismen til lokalisering af lydkilder.
Forskere fra laboratoriet for tale- og høre neuroingeniørkunst (teknologisk institut i New Jersey) har foreslået en ny model for den neuronale proces til lokalisering af lyd. Hvilke processer foregår i hjernen under opfattelsen af lyd, hvordan vores hjerne forstår placeringen af lydkilden, og hvordan denne undersøgelse kan hjælpe i kampen mod høretab. Det får vi at vide fra forskergruppens rapport. Lad os komme i gang.
Basis for undersøgelsen
Informationen, som vores hjerne modtager fra sanseorganerne, adskiller sig fra hinanden både med hensyn til kilde og behandling. Nogle signaler præsenterer straks præcise oplysninger for vores hjerne, mens andre kræver yderligere beregningsprocesser. Groft sagt, berøring føler vi øjeblikkeligt, men når vi hører en lyd, skal vi stadig finde ud af, hvor den kommer fra.
Grundlaget for lokalisering af lyde i den horisontale plan er interaural* tidsforskel (ITD fra interaural time difference) af lyde, der når lytters ører.
Den interaurale base* er afstanden mellem ørerne.
I hjernen er der et bestemt område (den mediale øvre oliven eller MVO), som er ansvarlig for denne proces. Når en lydsignal modtages, sker der en transformation af interaurale tidsforskelle i hastigheden af neuronernes reaktion i MVO. Formen på hastighedskurverne for MVO's udgangssignal som funktion af ITD minder om formen af den indbyrdes korrelationsfunktion for indgående signaler til hvert øre.
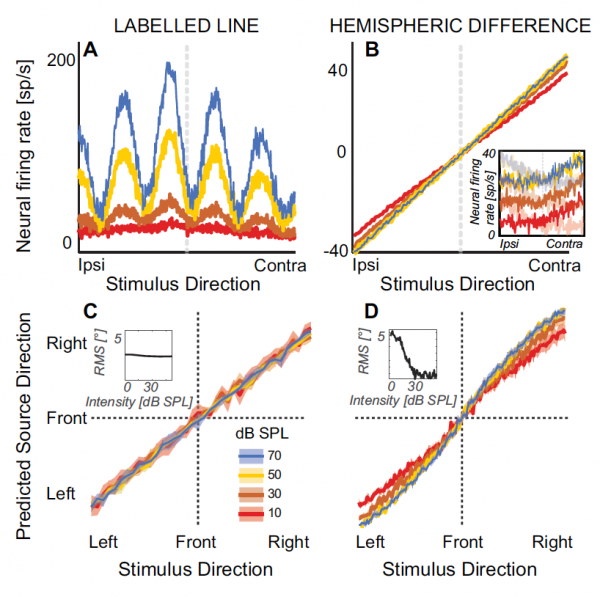
Hvordan information behandles og fortolkes i MBO forbliver ikke helt klart, hvilket har ført til flere modstridende teorier. Den mest kendte og reelt klassiske teori om lydlokalisering er Jeffress-modellen (Lloyd A. Jeffress). Den er baseret på mærkede linjer* af neuron-detektorer, der er følsomme over for binaural synkronisering af neurale indgangssignaler fra hvert øre, hvor hver neuron er mest følsom over for en bestemt mængde ITD (1A).
Princippet om de mærkede linjer* er en hypotese, der forklarer, hvordan forskellige nerver, som alle bruger de samme fysiologiske principper til at overføre impulser langs deres axoner, kan generere forskellige fornemmelser. Strukturelt ens nerver kan generere forskellige sensoriske opfattelser, hvis de er forbundet til unikke neuroner i centralnervesystemet, der kan afkode lignende neurale signaler på forskellige måder.
Billede nr. 1
Denne model er på en beregningsmæssig måde ligesom neuroncodning baseret på ubegrænsede indbyrdes korrelationer af lyde, der når begge ører.
Der eksisterer også en model, hvor det antages, at lydlokalisering kan modelleres baseret på forskelle i reaktionstiden for bestemte populationer af neuroner fra forskellige hjernehalvdele, nemlig modellen for hemisfærisk asymmetri (1V).
Det har tidligere været svært entydigt at hævde, hvilken af de to teorier (modeller) der er korrekt, da hver af dem forudsiger forskellige afhængigheder af lydlokaliseringen i forhold til lydens intensitet.
I den forskning, vi ser på i dag, besluttede forskerne at kombinere begge modeller for at forstå, om opfattelsen af lyde er baseret på neuroncodning eller på forskellen i reaktionen fra specifikke neuronpopulationer. Der blev udført flere eksperimenter, hvor deltagerne var i alderen 18 til 27 år (5 kvinder og 7 mænd). Deltagernes audiometri (måling af hørelsesskarphed) var 25 dB eller højere ved frekvenser fra 250 til 8000 Hz. Deltagerne i eksperimenterne blev placeret i et lydisoleret rum, hvor der var installeret specialudstyr, der var kalibreret med høj præcision. Deltagerne skulle, efter at have hørt et lydsignal, angive retningen, hvorfra det kom.
Resultaterne af undersøgelsen
Til vurdering af afhængigheden lateralisation* af hjerneaktivitet fra lydens intensitet i respons på mærkede neuroner blev der anvendt data om reaktionstiden for neuroner i det laminerede hjernekernen hos uglen.
Lateralitet* — asymmetri mellem venstre og højre halvdel af kroppen.
Til vurdering af afhængigheden af lateralisationen af hjerneaktivitet fra reaktionstiden for bestemte neuronpopulationer blev der anvendt data om aktiviteten fra det nederste hjørne i rhesusabens hjerne, hvorefter forskelle i hastigheden af neuroner fra forskellige hjernehalvdele blev yderligere beregnet.
Modellen for mærkede linjer af detektorneuroner antager, at når lydens intensitet mindskes, vil lateraliteten af den opfattede kilde konvergere mod middelværdier, der er ens for forholdet mellem stille og høje lyde (1C).
Modellen for interhemisfærisk asymmetri antyder på sin side, at ved et fald i lydens intensitet til næsten tærskelværdier vil den opfattede lateralitet skifte mod midtlinjen (1D).
Ved højere samlet lydintensitet antages det, at lateralisationen vil være invariant i forhold til intensiteten (indsættelse på 1C og 1D).
Følgelig gør analysen af, hvordan lydens intensitet påvirker den opfattede retning af lyden det muligt præcist at bestemme arten af de processer, der finder sted på det tidspunkt — neuroner fra et fælles område eller neuroner fra forskellige hjernehalvdele.
Det står klart, at en persons evne til at skelne ITD kan variere afhængigt af lydens intensitet. Men forskere siger, at det er ret kompliceret at fortolke tidligere konklusioner, der forbinder følsomheden over for ITD og vurderingen af retningen af lydkilden som en funktion af lydens intensitet. Nogle studier hævder, at ved at nå en lydintensitet til grænseværdien mindskes den opfattede lateralitet af kilden. Andre studier antyder derimod, at der slet ikke er nogen indflydelse af intensitet på opfattelsen.
Med andre ord antyder forskerne "blidt", at der er ret lidt information i litteraturen om forbindelsen mellem ITD, lydintensitet og bestemmelsen af retningen af dens kilde. Der eksisterer teorier, som fungerer som en slags aksiomer, accepteret af det videnskabelige samfund. Derfor blev det besluttet at undersøge alle teorier, modeller og mulige mekanismer for høresansens opfattelse i praksis grundigt.
Det første eksperiment blev udført ved hjælp af en psyko-fysisk paradigme, hvilket gjorde det muligt at studere lateralization baseret på ITD som en funktion af lydintensitet i en gruppe af ti normalt hørende deltagere.
Billede Nr. 2
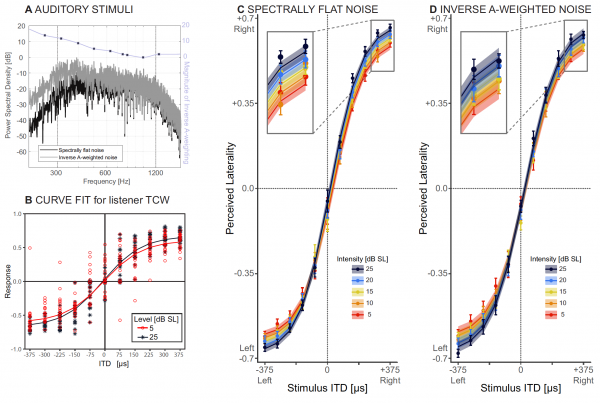
Lykkilderne blev specielt indstillet til at dække en stor del af frekvensområdet, inden for hvilket mennesker kan genkende ITD, dvs. fra 300 til 1200 Hz (2A).
I hver af forsøgene skulle lytteren angive den antagede lateralitet, målt som en funktion af følelsesniveauet, inden for ITD værdier fra 375 til 375 ms. For at bestemme indflydelsen af lydintensitet blev der anvendt en non-lineær blandingseffektmodel (NMLE), som inkluderede både fast og tilfældig lydintensitet.
Grafik 2B viser den vurderede lateralitet med spektrelt flad støj ved to lydintensiteter for en repræsentativ lytter. Og diagrammet 2C viser de rå data (cirkler) og tilpassede data til NMLE-modellen (linjer) for alle lyttere.
Tabel nr. 1
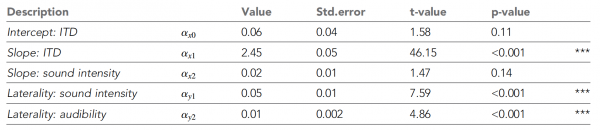
Tabelen ovenfor viser alle parametre for NLME. Det ses, at den opfattede lateralitet steg med en stigning i ITD, som forskerne forventede. Når lydintensiteten faldt, blev opfattelsen i stigende grad skubbet mod medianlinjen (indsætning på diagrammet 2C).
Disse tendenser blev understøttet af NLME-modellen, som viste en væsentlig indflydelse fra ITD og lydintensitet på den maksimale grad af lateralitet, hvilket bekræftede modellen for hemisfære-forskelle.
Desuden havde de gennemsnitlige audiometriske tærskler for rene toner en lille indflydelse på den opfattede lateralitet. Lydintensiteten påvirkede dog ikke psykometriske funktionsindikatorer betydeligt.
Hovedformålet med det andet eksperiment var at bestemme, hvordan resultaterne fra det tidligere eksperiment ville ændre sig, når man tog højde for de spektrale egenskaber ved stimuli (lyde). Behovet for at teste spektralt fladt støj ved lav lydintensitet ligger i, at dele af spektret muligvis ikke er hørbare, og dette kan påvirke bestemmelsen af lydretningen. Følgelig kan resultaterne fra det første eksperiment fejlagtigt antages at vise, at bredden af den hørbare del af spektret kan falde med faldende lydintensitet.
Derfor blev det besluttet at udføre endnu et eksperiment, men med anvendelse af baglæns A-vægtede* lyde.
A-vægtning* anvendes på lydniveauer for at tage højde for den relative hørlighed, der opfattes af det menneskelige øre, da øret er mindre følsomt over for lave lydfrekvenser. A-vægtning implementeres ved at aritmetisk tilføje værdierne fra en tabel, der er angivet i oktavbånd, til de målte lydtryk niveauer i dB.
På grafen 2D Viser rådata (cirkler) og data tilpasset den NMLE model (linjer) for alle deltagere i eksperimentet.
Dataanalysen viste, at når alle dele af lyden er omtrent lige hørbare (som i både det første og det andet eksperiment), falder den opfattede lateralitet og skråningen på grafen, der forklarer ændringen i lateralitet med ITD, med faldende lydintensitet.
Dermed bekræftede resultaterne fra det andet eksperiment resultaterne fra det første. Det vil sige, det blev praktisk vist, at den model, der blev foreslået af Jeffress i 1948, ikke er korrekt.
Det viser sig, at lokaliseringen af lyde forværres ved faldende lydintensitet, mens Jeffress mente, at lyde opfattes og behandles ens af mennesker uanset intensiteten.
For mere detaljeret information om nuancerne i undersøgelsen anbefaler jeg at kigge i .
Epilog
Teoretiske antagelser og de praktiske eksperimenter, der bekræfter dem, har vist, at nerveceller i hjernen hos pattedyr aktiveres med forskellige hastigheder afhængigt af retningen af lydsignalet. Derefter sammenligner hjernen disse hastigheder mellem alle involverede neuroner for dynamisk at danne et kort over lydmiljøet.
Jeffress-modellen er ikke helt forkert, da den effektivt kan beskrive lokaliseringen af lydkilden hos ugler. Ja, for uglerne er lydens intensitet ligegyldig, de vil stadig kunne bestemme placeringen af lydkilden. Men denne model fungerer ikke med rhesusaber, som tidligere eksperimenter har vist. Derfor kan Jeffress-modellen ikke beskrive lydlokalisering for alle levende væsener.
Eksperimenter med deltagelse af mennesker har igen bekræftet, at lokalisering af lyde foregår forskelligt hos forskellige organismer. Mange deltagere kunne ikke korrekt bestemme placeringen af lydkilderne på grund af lav intensitet af lydene.
Forskere mener, at deres arbejde viser en vis lighed mellem vores syn og hørelse. Begge processer er relateret til hastigheden af neuroner i forskellige dele af hjernen samt vurderingen af denne forskel for at bestemme både placeringen af de synlige genstande i rummet og placeringen af den lyd, vi hører.
Fremover planlægger forskerne at udføre en række eksperimenter for mere detaljeret at undersøge forbindelsen mellem menneskets hørelse og syn, hvilket vil give en bedre forståelse af, hvordan vores hjerner dynamisk opbygger et kort over den omgivende verden.
Tak for opmærksomheden, forbliv nysgerrige og hav en god arbejdsuge, alle sammen! 🙂
Tak fordi du bliver hos os. Kan du lide vores artikler? Ønsker du at se flere interessante materialer? Støt os ved at bestille eller anbefale os til dine bekendte, , 30% rabat til brugere af Habr på en unik entry-level server, som vi har opfundet til dig: (tilgængelige muligheder med RAID1 og RAID10, op til 24 kerner og op til 40 GB DDR4).
Dell R730xd er 2 gange billigere? Kun hos os i Holland! Dell R420 - 2x E5-2430 2.2GHz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB - fra 99 $! Læs om hvordan
Kilde: habr.com
