

Le mouvement, c'est la vie. Cette phrase peut être interprétée à la fois comme une motivation à avancer, à ne pas rester sur place et à atteindre ses objectifs, et comme une constatation que presque tous les êtres vivants passent la majeure partie de leur vie en mouvement. Afin que nos mouvements et déplacements dans l'espace ne se soldent pas chaque fois par des bosses sur le front et des orteils écrasés, notre cerveau utilise des « cartes » mémorisées de l'environnement, qui émergent sans que nous en ayons conscience au moment de notre déplacement. Cependant, certains pensent que le cerveau n'applique pas ces cartes de l'extérieur, mais plutôt en plaçant la personne sur cette carte et en recueillant des données à la première personne. Des scientifiques de l'Université de Boston ont décidé de prouver cette théorie en menant une série d'expériences pratiques avec des rats de laboratoire. Comment le cerveau s'oriente-t-il réellement dans l'espace, quelles cellules sont impliquées et quelle est l'importance de cette recherche pour l'avenir des voitures autonomes et des robots ? Nous le découvrirons grâce au rapport du groupe de recherche. Allons-y.
Fondement de l'étude
Ainsi, le fait établi il y a plusieurs années est que la principale partie du cerveau responsable de l'orientation dans l'espace est l'hippocampe.
L'hippocampe participe à divers processus : la formation des émotions, la transformation de la mémoire à court terme en mémoire à long terme et la formation de la mémoire spatiale. C'est cette dernière qui est à l'origine des fameuses « cartes » que notre cerveau active au bon moment pour une orientation plus efficace dans l'espace. Autrement dit, l'hippocampe stocke des modèles neuronaux tridimensionnels de l'espace dans lequel se trouve le propriétaire du cerveau.
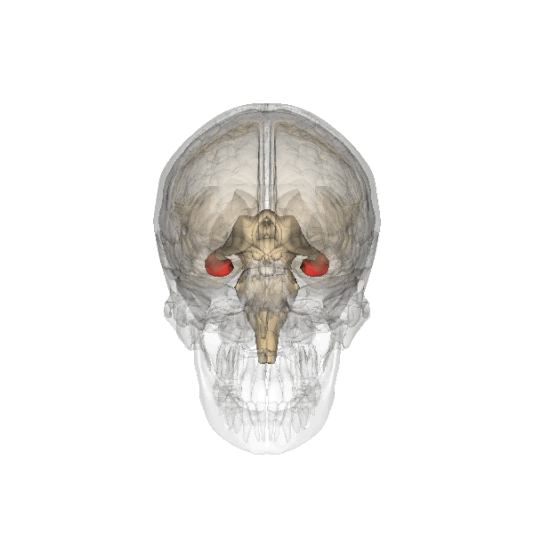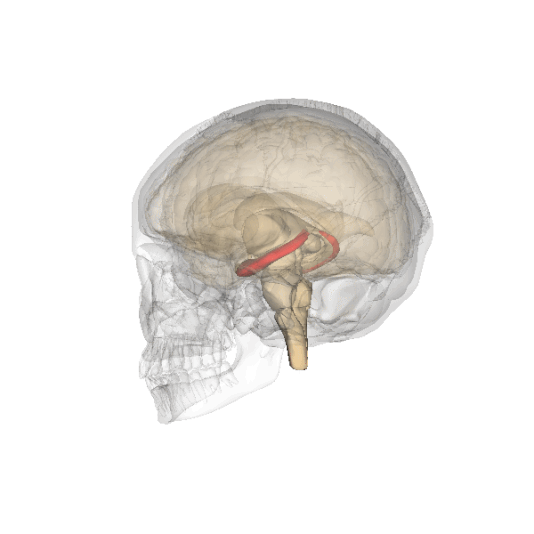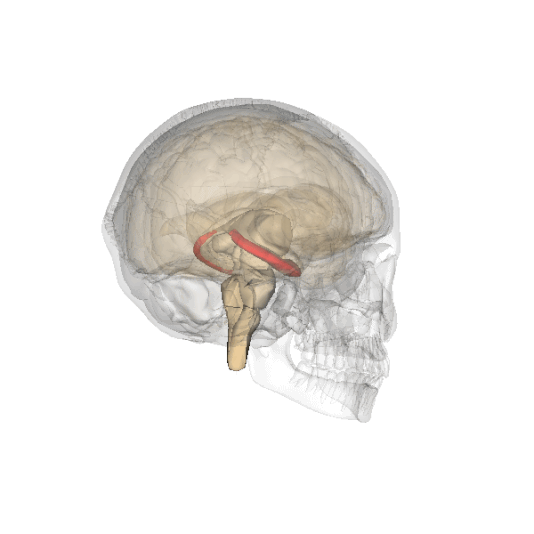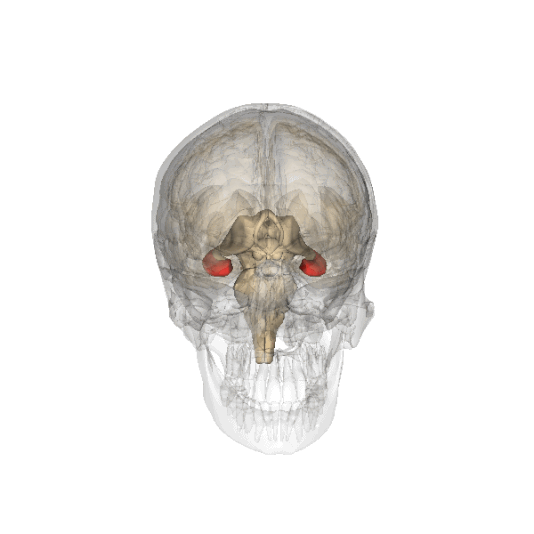
Hippocampe
Il existe une théorie qui affirme qu'il y a une étape intermédiaire entre la navigation réelle et les cartes de l'hippocampe – la transformation de ces cartes en vue à la première personne. En d'autres termes, une personne essaie de comprendre où se trouvent les choses non pas de manière générale (comme nous le voyons sur de vraies cartes), mais où se trouvent les choses par rapport à elle-même (comme la fonction « Street View » dans Google Maps).
Les auteurs de l'œuvre que nous examinons soulignent ce qui suit : Les cartes cognitives de l'environnement sont codées dans la formation hippocampique dans un système allocentrique, mais la motricité (les mouvements eux-mêmes) est représentée dans un système égocentrique.
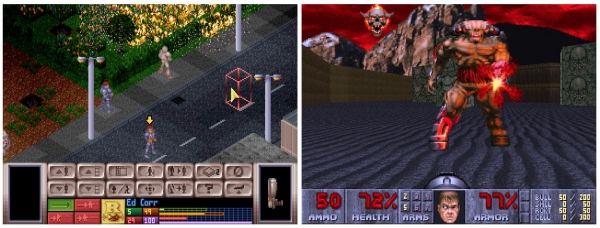
UFO: Enemy Unknown (système allocentrique) et DOOM (système égocentrique).
La différence entre les systèmes allocentrique et égocentrique ressemble à la différence entre les jeux à la troisième personne (ou de côté, de dessus, etc.) et les jeux à la première personne. Dans le premier cas, l'environnement lui-même est important pour nous, dans le second, notre position par rapport à cet environnement. Ainsi, les plans de navigation allocentriques doivent être convertis en un système égocentrique pour être effectivement mis en œuvre, c'est-à-dire pour se déplacer dans l'espace.
Les chercheurs estiment que c'est le striatum dorsomédian DMS* qui joue un rôle crucial dans le processus décrit ci-dessus.
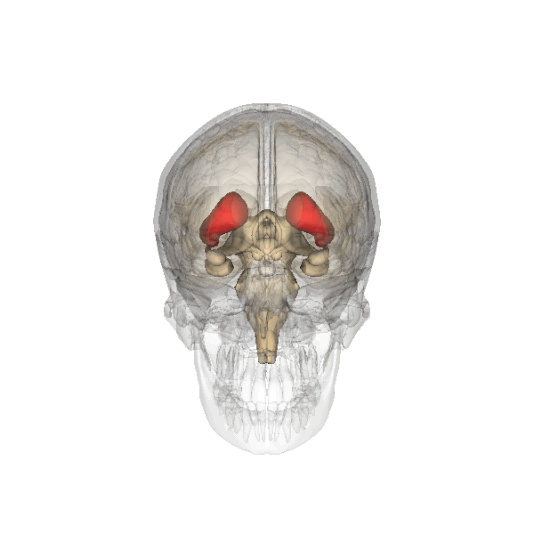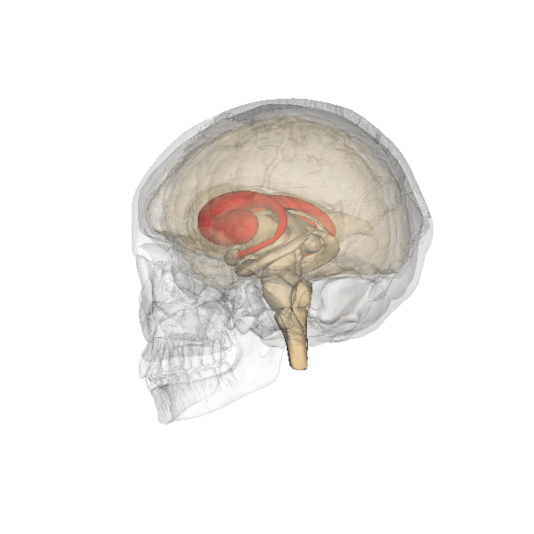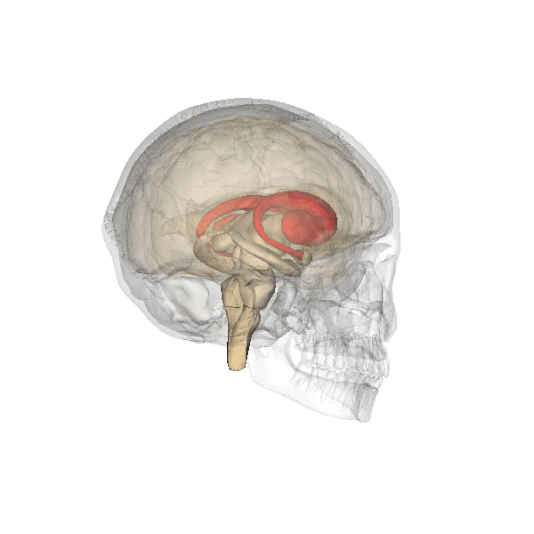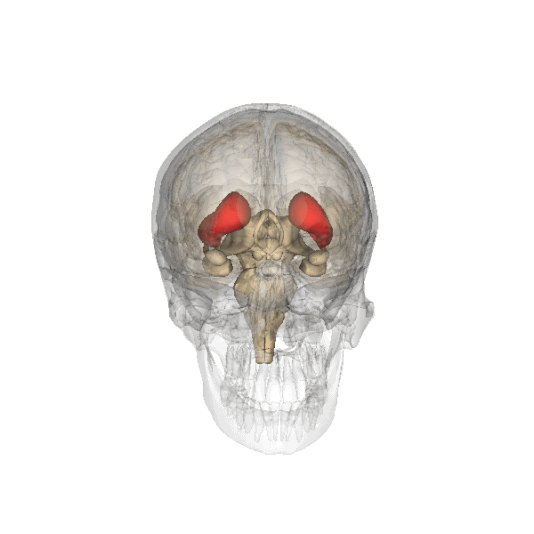
Le corps strié du cerveau humain.
Striatum* — une partie du cerveau qui appartient aux noyaux basaux ; le striatum participe à la régulation du tonus musculaire, des organes internes et des réactions comportementales ; le striatum est également appelé « corps strié » en raison de sa structure composée de bandes alternées de matière grise et blanche.
Le DMS montre des réponses neuronales liées à la prise de décision et à l'exécution d'actions concernant la navigation dans l'espace, c'est pourquoi cette région du cerveau mérite d'être étudiée plus en détail.
Résultats de l'étude
Pour déterminer la présence/l'absence d'informations spatiales égocentriques dans le corps strié (DMS), quatre mâles rats ont reçu jusqu'à 16 électrodes (des électrodes spéciales connectées aux zones requises du cerveau), ciblées sur le DMS (1a).
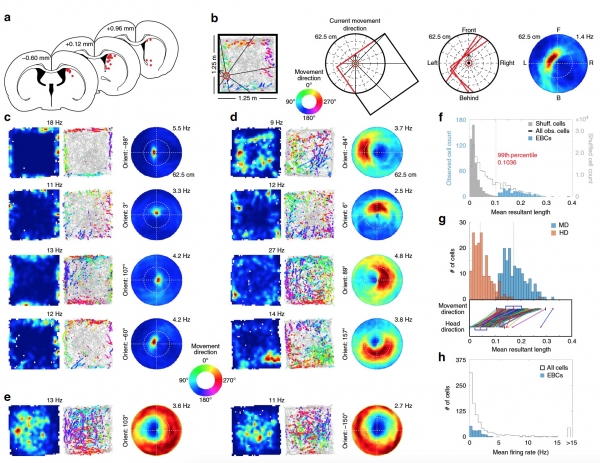
Image n°1 : réponse des cellules du corps strié aux frontières de l'environnement dans le système de référence égocentrique.
Explications pour l'image n°1 :plus — points d'emplacement des électrodes ;
b — carte égocentrique des frontières ;
avec — cartes spatiales allocentriques (4 carrés à gauche), graphiques des trajectoires avec un code couleur des emplacements des pics de réaction des cellules par rapport à la position du corps et cartes égocentriques (4 carrés à droite) basées sur la réaction des cellules EBC à différentes orientations et distances entre le rat et le mur ;
d — comme sur 1C, mais pour EBC avec des distances préférentielles éloignées de l'animal ;
e — comme sur 1C, mais pour deux EBC inverses;
f — distribution de la longueur résultante moyenne pour les cellules observées;
g — distribution de la longueur résultante moyenne pour les EBC en utilisant la direction du mouvement et la direction de la tête;
h — distribution de la réponse moyenne des cellules (toutes et EBC).
Quarante-quatre expériences ont été menées lorsque des rats rassemblaient de la nourriture éparpillée au hasard dans un environnement qui leur était familier (ouvert, pas dans un labyrinthe). En conséquence, 939 cellules ont été enregistrées. Parmi les données recueillies, 31 cellules de direction de tête (HDC) ont été identifiées, mais très peu de cellules, précisément 19, avaient des corrélats spatiaux allocentriques. L'activité de ces cellules, limitée par le périmètre de l'environnement, n'a été observée que lors du mouvement du rat le long des murs de la chambre de test, ce qui suggère un schéma d'encodage égo-centrique des frontières de l'espace.
Pour évaluer les capacités d'une telle représentation égo-centrique sur la base des pics d'activité cellulaire, des cartes égo-centriques des frontières (1b), qui illustrent l'orientation et la distance des frontières par rapport à la direction du mouvement du rat, et non à la position de sa tête (comparaison à 1g).
18 % des cellules enregistrées (171 sur 939) montraient une réponse significative lorsque la frontière de la chambre occupait une position et une orientation spécifiques par rapport à l'animal (1f). Les chercheurs les ont appelées cellules des frontières égo-centriques (EBC — egocentric boundary cells). Le nombre de ces cellules chez les sujets variait de 15 à 70, avec une moyenne de 42,75 (1c, 1d).
Parmi les cellules des frontières égo-centriques, certaines avaient une activité réduite en réponse aux frontières de la caméra. Au total, elles étaient 49 et ont été appelées EBC inverses (iEBC). Le niveau de réponse des cellules (leur potentiel d'action) chez les EBC et les iEBC était assez faible — 1,26 ± 0,09 Hz (1h).
La population de cellules EBC réagit à toutes les orientations et positions de la frontière de la caméra par rapport au sujet, mais la distribution de l'orientation préférée est bimodale, avec des pics situés à 180° l'un en face de l'autre de chaque côté de l'animal (-68° et 112°), légèrement décalée de la perpendiculaire à l'axe long de l'animal de 22° (2d).
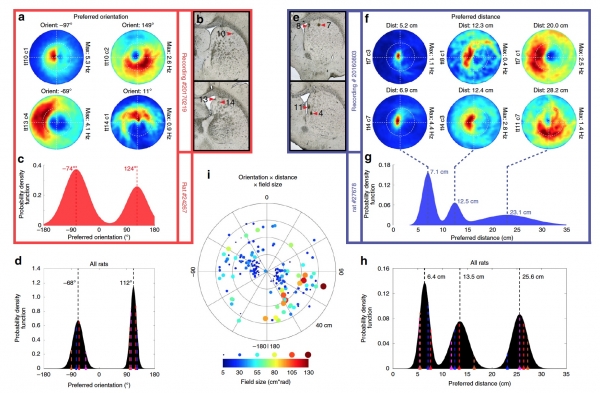
Image n°2 : orientation préférée et distance pour la réponse des cellules égo-centriques des frontières (EBC).
Légendes de l'image n°2 :a — cartes égocentriques des frontières pour quatre EBC simultanément étudiés avec différentes orientations préférentielles indiquées au-dessus de chaque graphique ;
b — positions des tétraèdres en fonction des cellules issues de 2a (les numéros indiquent le numéro du tétraèdre) ;
avec — distribution des probabilités des orientations préférentielles pour tous les EBC d'un rat ;
d — distribution des probabilités des orientations préférentielles pour les EBC de tous les rats ;
e — positions des tétraèdres pour les cellules montrées sur 2f;
f — cartes égocentriques des frontières pour six EBC enregistrés simultanément avec différentes distances préférentielles indiquées au-dessus de chaque graphique ;
g — distribution des probabilités de la distance préférentielle pour tous les EBC d'un rat ;
h — distribution des probabilités de la distance préférentielle pour les EBC de tous les rats ;
i — graphique polaire de la distance et de l'orientation préférentielles pour tous les EBC, avec la taille de l'espace représentée par la couleur et le diamètre des points.
La distribution de la distance préférentielle jusqu'à la frontière contenait trois pics : 6,4, 13,5 et 25,6 cm, indiquant la présence de trois distances préférentielles distinctes entre les EBC (2f—2h), qui peuvent être importantes pour la stratégie de recherche de navigation hiérarchique. La taille des champs récepteurs des EBC augmentait en fonction de la distance préférentielle (2i), ce qui indique une augmentation de la précision de la représentation égocentrique des frontières lorsque la distance entre le mur et le sujet diminue.
Tant pour l'orientation préférentielle que pour la distance, il manquait une topographie claire, car les EBC actifs du sujet avec différentes orientations et distances par rapport au mur apparaissaient sur le même tétraèdre (2a, 2b, 2e et 2f).
Il a également été constaté que les EBC réagissent de manière cohérente aux frontières de l'espace (murs de la chambre) dans toutes les variantes des chambres testées. Pour confirmer que les EBC réagissent aux frontières locales de la chambre et non à ses caractéristiques distales, les chercheurs ont « tourné » la position de la chambre de 45° et ont rendu certains murs noirs, la rendant différente de celle utilisée dans les tests précédents.
Des données ont été recueillies à la fois dans une chambre de test normale et dans une chambre inclinée. Malgré le changement de la chambre de test, toutes les orientations préférées et les distances par rapport aux murs pour les cellules EBC sont restées les mêmes.
Étant donné l'importance des angles, la possibilité que les cellules EBC codent de manière unique ces attributs locaux de l'environnement a également été envisagée. En extrayant la différence entre la réaction près des angles et la réaction près du milieu du mur, un sous-ensemble de cellules EBC (n = 16 ; 9,4 %) a été identifié, montrant une réponse accrue aux angles.
On peut ainsi en conclure provisoirement que ce sont les cellules EBC qui réagissent parfaitement au périmètre de la chambre, c'est-à-dire aux murs de la chambre de test et à ses angles.
Ensuite, les chercheurs ont vérifié si la réaction des cellules EBC à l'espace ouvert (arène de test sans labyrinthe, c'est-à-dire simplement 4 murs) était la même avec différentes tailles de la chambre de test. Trois essais ont été réalisés, chacun avec une longueur des murs différente de 50 cm par rapport au précédent.
Indépendamment des dimensions de la chambre de test, les cellules EBC réagissaient aux limites de celle-ci à la même distance et orientation par rapport à l'objet d'étude. Cela indique une absence d'échelle de la réaction en fonction de la taille de l'environnement.
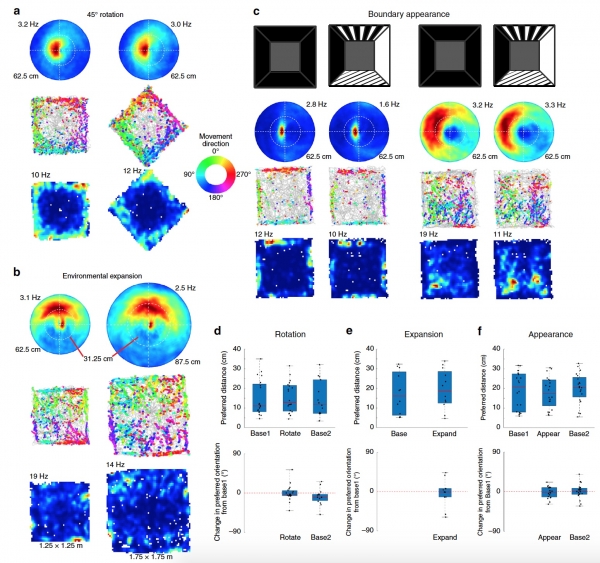
Image n°3 : réaction stable des cellules EBC aux limites de l'espace.
Explications pour l'image n°3 :plus — cartes égocentriques des cellules EBC dans des conditions normales (à gauche) et avec la chambre de test inclinée à 45° (à droite) ;
b — cartes égocentriques des cellules EBC pour une chambre de 1,25 x 1,25 m (à gauche) et pour une chambre agrandie de 1,75 x 1,75 m (à droite) ;
avec — cartes égocentriques des cellules EBC avec des murs noirs ordinaires dans la chambre (à gauche) et avec des murs à motifs (à droite) ;
d—f — graphiques de la distance préférée (en haut) et du changement d'orientation préférée par rapport à la ligne de base (en bas).
Puisque le corps strié reçoit des informations sur l'environnement de plusieurs zones du cortex visuel, les chercheurs ont également vérifié si l'apparence des murs (3c) de la chambre influençait la réaction des cellules EBC.
Le changement d'apparence des limites de l'espace n'a pas affecté la réaction des cellules EBC ni la distance et l'orientation nécessaires à la réaction par rapport à l'objet d'étude.
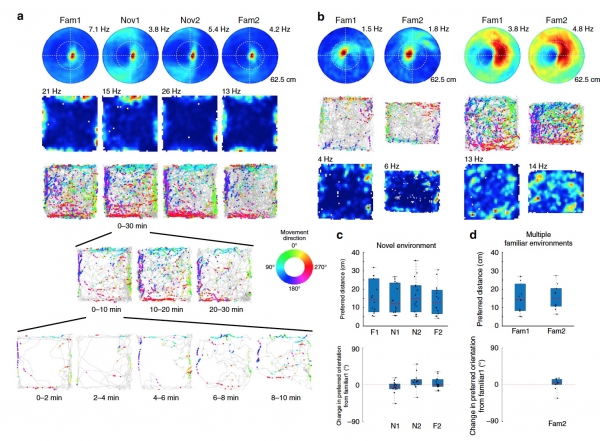
Image n°4 : stabilité de la réaction des cellules EBC indépendamment de l'environnement.
Légendes de l'image n°4 :plus — cartes égocentriques pour l'EBC dans un environnement familier (à gauche) et nouvel (à droite) ;
b — cartes égocentriques pour l'EBC, obtenues dans le même environnement, mais avec un intervalle de temps ;
avec — graphiques de la distance préférée (en haut) et du changement d'orientation préférée par rapport à la base (en bas) pour de nouveaux (inconnus) environnements ;
d — graphiques de la distance préférée (en haut) et du changement d'orientation préférée par rapport à la base (en bas) pour des environnements précédemment étudiés (familiers).
Il a également été établi que la réaction des cellules EBC, ainsi que l'orientation et la distance nécessaires par rapport au sujet, ne changent pas avec le temps.
Cependant, ce test « temporel » a été réalisé dans la même chambre de test. Il était également nécessaire de vérifier quelle était la différence entre la réaction de l'EBC dans des conditions connues et dans des nouvelles. Pour cela, plusieurs séries d'expériences ont été menées, où les rats exploraient une chambre qu'ils connaissaient déjà des tests précédents, suivie de nouvelles chambres avec un espace ouvert.
Comme vous l'avez sans doute deviné, la réaction des cellules EBC + l'orientation/distance requises sont restées inchangées dans les nouvelles chambres (4a, 4c).
Ainsi, la réaction de l'EBC assure une représentation stable des limites de l'environnement par rapport au sujet dans tous les types de cet environnement, quel que soit l'aspect des murs, la taille de la chambre de test, son déplacement et le temps passé par le sujet dans la chambre.
Pour une compréhension plus approfondie des nuances de l'étude, je recommande de consulter le et à ce sujet.
Épilogue
Dans ce travail, les chercheurs ont réussi à confirmer pratiquement la théorie de la représentation égocentrique de l'environnement, ce qui est crucial pour l'orientation spatiale. Ils ont prouvé qu'il existe un processus intermédiaire entre la représentation spatiale allocentrique et l'action réelle, impliquant des cellules spécifiques du corps strié, appelées cellules de limites égocentriques (EBC). Il a également été établi que les EBC sont davantage liées à la gestion des mouvements du corps entier, et pas seulement de la tête des sujets.
Cette étude visait à déterminer le mécanisme complet de l'orientation dans l'espace, tous ses éléments et variables. Selon les chercheurs, ce travail contribuera à perfectionner les technologies de navigation pour les véhicules autonomes et les robots, qui pourront comprendre l'environnement qui les entoure, tout comme nous le faisons. Les chercheurs sont extrêmement ravis des résultats de leur travail, qui fournissent des bases pour continuer à étudier la relation entre certaines zones du cerveau et la manière dont l'orientation dans l'espace est réalisée.
Merci pour votre attention, restez curieux et passez une excellente semaine de travail, les amis ! 🙂
Merci de rester avec nous. Aimez-vous nos articles ? Voulez-vous voir plus de contenus intéressants ? Soutenez-nous en passant une commande ou en recommandant à vos amis. 30% de réduction pour les utilisateurs de Habr sur un équivalent unique des serveurs d'entrée de gamme, conçu spécialement pour vous : (options disponibles avec RAID1 et RAID10, jusqu'à 24 cœurs et jusqu'à 40 Go DDR4).
Dell R730xd à moitié prix ? Uniquement chez nous aux Pays-Bas ! Dell R420 — 2x E5-2430 2.2GHz 6C 128Go DDR3 2x960Go SSD 1Gbps 100To — à partir de 99 $ ! Lisez sur
Source : habr.com
