

Le monde qui nous entoure est rempli d'une multitude d'informations que notre cerveau traite en continu. Il obtient ces informations grâce à nos sens, chacun étant responsable de sa part de signaux : les yeux (vue), la langue (goût), le nez (odorat), la peau (toucher), l'organe vestibulaire (équilibre, position dans l'espace et sensation de poids) et les oreilles (son). En rassemblant les signaux de tous ces organes, notre cerveau peut construire une image précise de notre environnement. Cependant, tous les aspects du traitement des signaux externes ne nous sont pas connus. L'un de ces mystères est le mécanisme de localisation des sources sonores.
Des scientifiques du laboratoire de neuro-ingénierie de la parole et de l'audition (Institut technologique du New Jersey) ont proposé un nouveau modèle du processus neuronal de localisation du son. Quels processus se déroulent dans notre cerveau lors de la perception du son, comment notre cerveau comprend-il la position de la source sonore et comment cette recherche peut-elle aider à lutter contre les déficits auditifs ? C'est ce que nous découvrons dans le rapport du groupe de recherche. Allons-y.
Fondement de l'étude
Les informations que notre cerveau reçoit de nos sens diffèrent les unes des autres tant en termes de sources que de traitement. Certains signaux se présentent immédiatement à notre cerveau sous forme d'informations précises, tandis que d'autres nécessitent des processus de calcul supplémentaires. En gros, nous ressentons immédiatement le toucher, mais pour un son, nous devons d'abord déterminer d'où il provient.
La base de la localisation des sons dans le plan horizontal est interaurale* la différence de temps (ITD de interaural time difference) des sons atteignant les oreilles de l'auditeur.
La base interaurale* est la distance entre les oreilles.
Dans le cerveau, il existe une région spécifique (olive supérieure médiale ou OSB) qui est responsable de ce processus. Au moment de la réception du signal sonore dans l'OSB, les différences interaurales de temps sont transformées en vitesse de réaction des neurones. La forme des courbes de vitesse de sortie de l'OSB en fonction de l'ITD ressemble à celle de la fonction de corrélation croisée des signaux d’entrée pour chaque oreille.
La façon dont l'information est traitée et interprétée dans le cerveau reste peu claire, ce qui a donné lieu à plusieurs théories assez contradictoires. La théorie de localisation du son la plus connue et en fait classique est le modèle de Jeffress (Lloyd A. Jeffress). Elle repose sur la ligne marquée* de neurones détecteurs qui sont sensibles à la synchronisation binaurale des signaux nerveux d'entrées provenant de chaque oreille, chaque neurone étant maximement sensible à une certaine valeur de l'ITD (1A).
Le principe de la ligne marquée* est une hypothèse expliquant comment différents nerfs, tous utilisant les mêmes principes physiologiques pour transmettre des impulsions le long de leurs axones, peuvent générer des sensations différentes. Des nerfs structurellement similaires peuvent générer différentes perceptions sensorielles s'ils sont connectés à des neurones uniques dans le système nerveux central capables de décoder des signaux nerveux similaires de différentes manières.
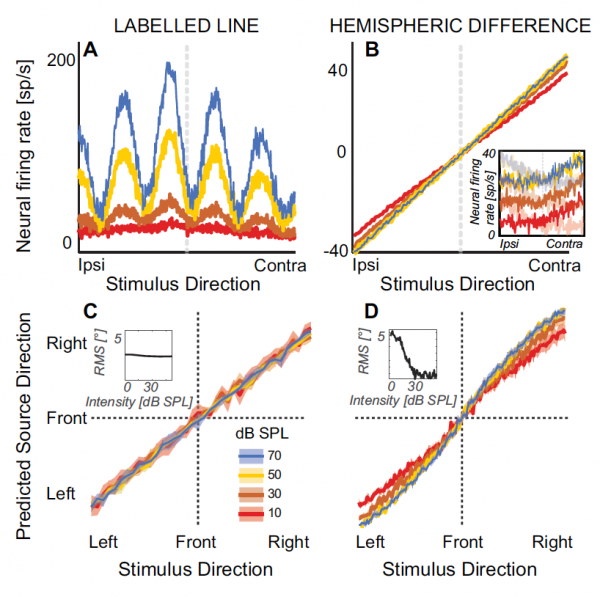
Image n°1
Ce modèle est computationnellement similaire à un codage neuronal basé sur des corrélations réciproques illimitées des sons atteignant les deux oreilles.
Il existe également un modèle suggérant que la localisation du son peut être modélisée sur la base des différences de vitesse de réaction de certaines populations de neurones des hémisphères cérébraux, c'est-à-dire le modèle d'asymétrie inter-hémisphérique (1B).
Il a été difficile jusqu'à présent de dire de manière définitive laquelle des deux théories (modèles) est correcte, étant donné que chacune prédit différentes dépendances de la localisation du son par rapport à l'intensité sonore.
Dans l'étude que nous examinons aujourd'hui, les chercheurs ont décidé de combiner les deux modèles pour comprendre si la perception des sons repose sur un codage neuronal ou sur la différence de réaction de populations neuronales distinctes. Plusieurs expériences ont été réalisées, impliquant des individus âgés de 18 à 27 ans (5 femmes et 7 hommes). L'audiométrie (mesure de l'acuité auditive) des participants était de 25 dB ou plus à des fréquences de 250 à 8000 Hz. Les participants aux expériences étaient placés dans une pièce insonorisée, équipée d'un matériel calibré avec une grande précision. Les participants devaient indiquer la direction d'où provenait un signal sonore entendu.
Résultats de l'étude
Pour évaluer la dépendance de la latéralisation* de l'activité cérébrale à l'intensité sonore, des données sur la vitesse de réponse des neurones dans le noyau laminaire du cerveau de la chouette ont été utilisées.
Latéralité* — asymétrie entre les hémisphères gauche et droit du corps.
Pour évaluer la dépendance de la latéralisation de l'activité cérébrale à la vitesse de réaction de certaines populations de neurones, des données d'activité du colliculus inférieur du singe rhésus ont été utilisées, suivies d'un calcul des différences de vitesse des neurones provenant de différents hémisphères.
Le modèle de neurones-détenteurs marqués suppose qu'avec une diminution de l'intensité sonore, la latéralité de la source perçue se rapprochera des valeurs moyennes, semblables pour la relation entre sons doux et forts (1C).
Le modèle d'asymétrie interhémisphérique, quant à lui, suppose qu'avec une diminution de l'intensité sonore jusqu'à presque un seuil, la latéralité perçue se déplacera vers la ligne médiane (1D).
Avec une intensité sonore globale plus élevée, il est supposé que la latéralisation sera invariante selon l'intensité (inscriptions sur 1C et 1D).
Par conséquent, analyser comment l'intensité sonore influence la direction perçue du son permet de déterminer avec précision la nature des processus en cours à ce moment — neurones d'une même région générale ou neurones de différents hémisphères.
Il est évident que la capacité d'un individu à distinguer l'ITD peut varier selon l'intensité sonore. Cependant, les chercheurs affirment qu'il est assez difficile d'interpréter les conclusions précédentes liant la sensibilité à l'ITD et l'évaluation par l'auditeur de la direction de la source sonore en fonction de l'intensité sonore. Certaines études déclarent qu'à mesure que l'intensité sonore atteint un seuil limite, la latéralité perçue de la source diminue. D'autres études affirment qu'il n'y a pas d'influence de l'intensité sur la perception.
En d'autres termes, les chercheurs suggèrent « discrètement » qu'il existe insuffisamment d'informations dans la littérature concernant le lien entre ITD, l'intensité sonore et la détermination de la direction de sa source. Il existe des théories qui existent comme une sorte d'axiomes, acceptés par la communauté scientifique. Par conséquent, il a été décidé d'examiner en détail toutes les théories, modèles et mécanismes de perception auditive dans la pratique.
Le premier expérience a été conçue sur la base d'une paradigm psychophysique, permettant d'étudier la latéralisation en fonction de l'ITD comme une fonction de l'intensité sonore dans un groupe de dix participants ayant une audition normale.
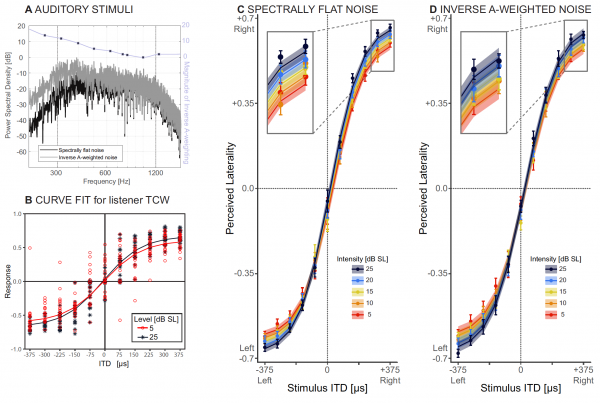
Image n°2
Les sources sonores étaient spécifiquement réglées pour couvrir une large gamme de fréquences, dans lesquelles les humains sont capables de reconnaître l'ITD, c'est-à-dire de 300 à 1200 Hz (2A).
Dans chaque essai, l'auditeur devait indiquer la latéralité supposée, mesurée comme une fonction du niveau des sensations, dans une gamme de valeurs ITD allant de 375 à 375 ms. Pour déterminer l'impact de l'intensité sonore, un modèle non linéaire à effets mixtes (NMLE) a été utilisé, incluant à la fois une intensité sonore fixe et aléatoire.
Graphique 2B démontre la latéralisation estimée avec un bruit spectrallement plat à deux intensités sonores pour un auditeur représentatif. Et le graphique 2C montre les données brutes (cercles) et ajustées au modèle NMLE (lignes) pour tous les auditeurs.
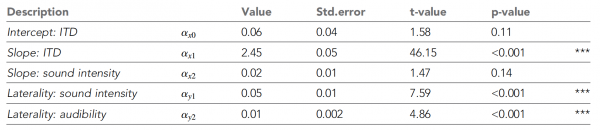
Tableau n°1
Le tableau ci-dessus montre tous les paramètres NLME. On peut voir que la latéralité perçue augmentait avec l'augmentation de l'ITD, comme les chercheurs l'avaient prévu. Avec la diminution de l'intensité sonore, la perception se déplaçait de plus en plus vers la ligne médiane (inscription dans le graphique 2C).
Ces tendances étaient soutenues par le modèle NLME, qui a montré une influence significative de l'ITD et de l'intensité sonore sur le degré maximal de latéralité, confirmant le modèle des différences interhémisphériques.
De plus, l'impact des seuils audiométriques moyens des tons purs sur la latéralité perçue était négligeable. En revanche, l'intensité sonore n'avait pas d'impact significatif sur les fonctions psychométriques.
L'objectif principal de la deuxième expérience était de déterminer comment les résultats obtenus lors de l'expérience précédente changeraient en tenant compte des caractéristiques spectrales des stimuli (sons). La nécessité de vérifier le bruit à spectre plan à faible intensité sonore réside dans le fait que certaines parties du spectre peuvent ne pas être audibles, ce qui peut affecter la détermination de la direction du son. Par conséquent, on pourrait à tort prendre pour acquis que les résultats de la première expérience indiquent que la largeur de la partie audible du spectre peut diminuer avec la diminution de l'intensité sonore.
Ainsi, il a été décidé de mener une autre expérience, mais cette fois avec l'application de bruits A-weighted* .
Le pondération A* est appliquée aux niveaux sonores pour tenir compte de l'intensité relative perçue par l'oreille humaine, car l'oreille est moins sensible aux basses fréquences sonores. La pondération A est réalisée par l'addition arithmétique d'une table de valeurs répertoriées dans des bandes octavées, aux niveaux mesurés de pression sonore en dB.
Sur le graphique 2D Les données brutes (cercles) et les données ajustées au modèle NMLE (lignes) de tous les participants à l'expérience sont montrées.
L'analyse des données a montré que lorsque toutes les parties du son sont à peu près également audibles (comme dans la première et la deuxième expérience), la latéralité perçue et l'inclinaison sur le graphique, expliquant le changement de latéralité avec le ITD, diminuent avec la baisse de l'intensité sonore.
Ainsi, les résultats de la deuxième expérience ont confirmé les résultats de la première. En d'autres termes, il a été montré en pratique que le modèle proposé par Jeffress en 1948 n'est pas correct.
Il s'avère que la localisation des sons se dégrade lors de la réduction de l'intensité sonore, alors que Jeffress pensait que les sons étaient perçus et traités de la même manière par l'homme, quelle que soit leur intensité.
Pour une compréhension plus approfondie des nuances de l'étude, je recommande de consulter le .
Épilogue
Les hypothèses théoriques et les expériences pratiques qui les confirment ont montré que les neurones du cerveau des mammifères s'activent à des vitesses différentes selon la direction du signal sonore. Ensuite, le cerveau compare ces vitesses entre tous les neurones impliqués dans le processus pour construire dynamiquement une carte de l'environnement sonore.
Le modèle de Jefferson n'est en réalité pas complètement erroné, car il permet de décrire parfaitement la localisation de la source sonore chez les hiboux. Oui, pour les hiboux, l'intensité du son n'a pas d'importance, ils peuvent de toute façon déterminer la position de sa source. Cependant, ce modèle ne fonctionne pas avec les macaques rhésus, comme l'ont montré des expériences précédemment menées. Par conséquent, ce modèle de Jefferson ne peut pas décrire la localisation des sons pour tous les êtres vivants.
Les expériences impliquant des humains ont à nouveau confirmé que la localisation des sons se déroule différemment chez divers organismes. Beaucoup de participants n'ont pas pu déterminer correctement la position des sources des signaux sonores en raison de l'intensité faible des sons.
Les scientifiques estiment que leur travail montre une certaine similarité entre la façon dont nous voyons et comment nous entendons. Les deux processus sont liés à la vitesse des neurones dans différentes zones du cerveau, ainsi qu'à l'évaluation de cette différence pour déterminer à la fois la position des objets que nous voyons dans l'espace et celle de la source des sons que nous entendons.
Dans le futur, les chercheurs prévoient de mener une série d'expérimentations pour examiner plus en détail la connexion entre l'audition et la vision humaine, ce qui permettra de mieux comprendre comment notre cerveau construit dynamiquement une carte du monde environnant.
Merci pour votre attention, restez curieux et passez une excellente semaine de travail, les amis ! 🙂
Merci de rester avec nous. Aimez-vous nos articles ? Voulez-vous voir plus de contenu intéressant ? Soutenez-nous en passants une commande ou en nous recommandant à des amis, , 30% de réduction pour les utilisateurs de Habr sur un équivalent unique des serveurs d'entrée de gamme, conçu spécialement pour vous : (options disponibles avec RAID1 et RAID10, jusqu'à 24 cœurs et jusqu'à 40 Go DDR4).
Dell R730xd à moitié prix ? Uniquement chez nous aux Pays-Bas ! Dell R420 — 2x E5-2430 2.2GHz 6C 128Go DDR3 2x960Go SSD 1Gbps 100To — à partir de 99 $ ! Lisez sur
Source : habr.com
