

A mozgás az élet. Ezt a mondatot úgy is lehet értelmezni, mint motivációt a továbblendülésre, hogy ne álljunk meg, hanem elérjük a kívánt célt, és mint állapotmegállapítást, miszerint a legtöbb élőlény élete nagy részében mozgásban van. Annak érdekében, hogy mozgásaink és térbeli elhelyezkedésünk ne végződjön mindig horzsolásokkal és eltört kisujjakkal, az agyunk használja a környezet tárolt „térképeit”, amelyek tudatalattiban előbukkannak mozgás közben. Azonban van az a vélemény, hogy az agy ezeket a térképeket nem kívülről használja, hanem az embert elhelyezve ezen a térképen, az első személy perspektívájából gyűjt adatokat. Ezt a teóriát a Boston University tudósai próbálták bizonyítani laboratóriumi patkányokkal végzett kísérletekkel. Hogyan is tájékozódik pontosan az agy a térben, milyen sejtek játszanak ebben szerepet, és milyen hatással van ez a kutatás a jövő autonóm autóira és robotjaira? Erről fogunk többet megtudni a kutatócsoport beszámolójából. Indulás!
A kutatás alapja
Tehát, amit évek óta tudunk, az az, hogy az agy azon része, amely a térbeli tájékozódásért felelős, a hippocampus.
A hippocampus különféle folyamatokban részt vesz: érzelmek kialakítása, a rövid távú memória hosszú távúvá alakítása és a térbeli memória kialakítása. Az utóbbi az, amely a híres „térképeket” tárolja, amelyeket agyunk megfelelő pillanatokban előhív a hatékonyabb térbeli tájékozódás érdekében. Más szavakkal, a hippocampus háromdimenziós neuronális modelleket tárol a térben, amelyben az agy birtokosa tartózkodik.
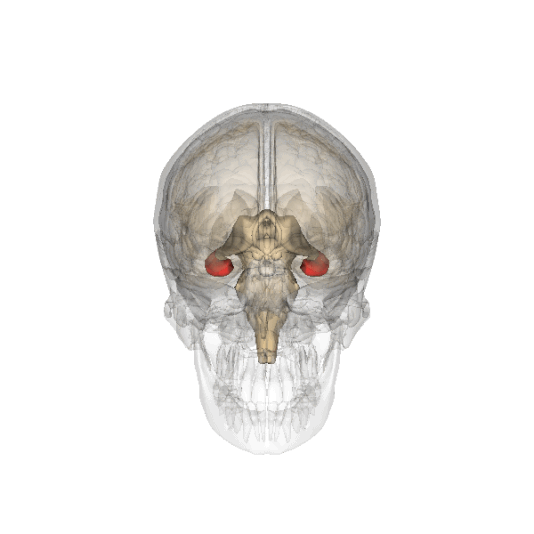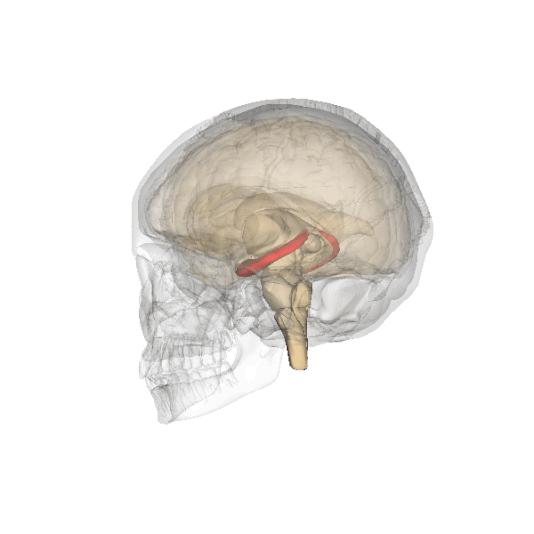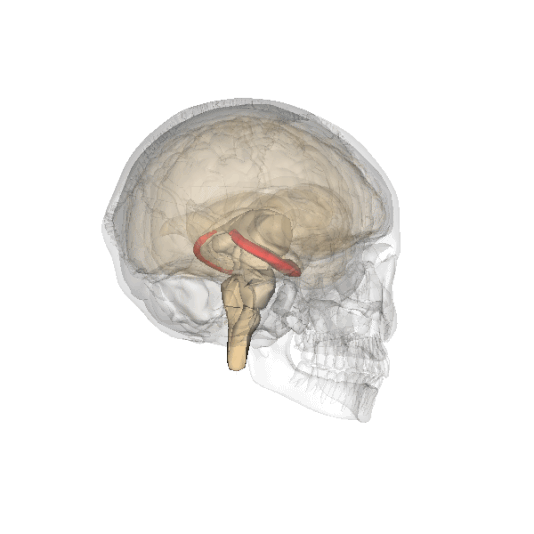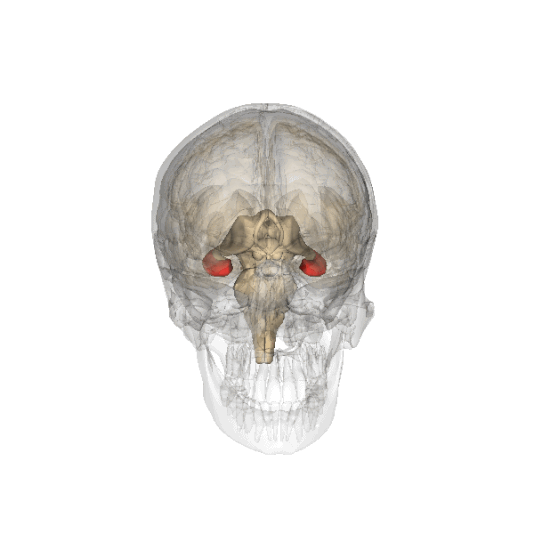
Hippocampus
Létezik egy elmélet, amely azt állítja, hogy a tényleges navigáció és a hippocampus térképei között van egy köztes szakasz — a térképek első személy nézetre történő átalakítása. Vagyis az ember megpróbálja megérteni, hol találhatóak a dolgok nem úgy, ahogy azok a valós térképeken szerepelnek, hanem hogy azok hogyan helyezkednek el a saját magához képest (mint a Google Maps „utcák nézet” funkciója).
A vizsgált munka szerzői hangsúlyozzák: A környezeti kognitív térképek a hippokampusz rendszerében allo-centális rendszerben kódolódnak, míg a motorika (maga a mozgás) ego-centális rendszerben van jelen.
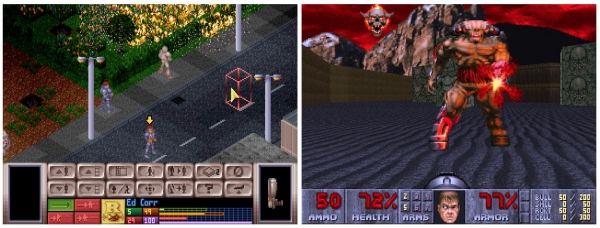
UFO: Enemy Unknown (allo-centális rendszer) és DOOM (ego-centális rendszer).
Az allo-centális és ego-centális rendszerek közötti különbség emlékeztet a harmadik személy nézetű (vagy oldalról, felülről stb. látható) játékok és az első személy nézetes játékok közötti különbségre. Az első esetben fontos számunkra a környezet, míg a másodikban a környezethez képest elfoglalt helyzetünk. Így az allo-centális navigációs terveknek ego-centális rendszerbe kell kerülniük a tényleges megvalósításhoz, azaz a térben való mozgáshoz.
A kutatók úgy vélik, hogy a dorzomedialis striatum (DMS)* fontos szerepet játszik a fentebb leírt folyamatban.
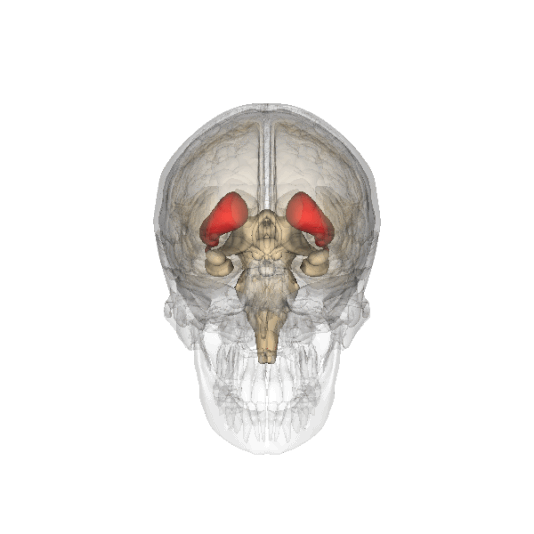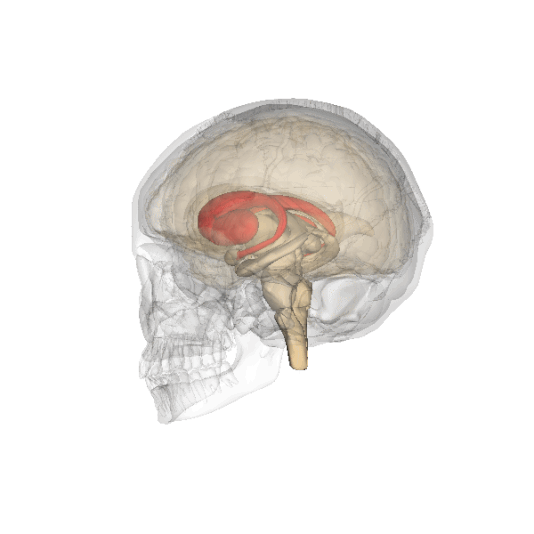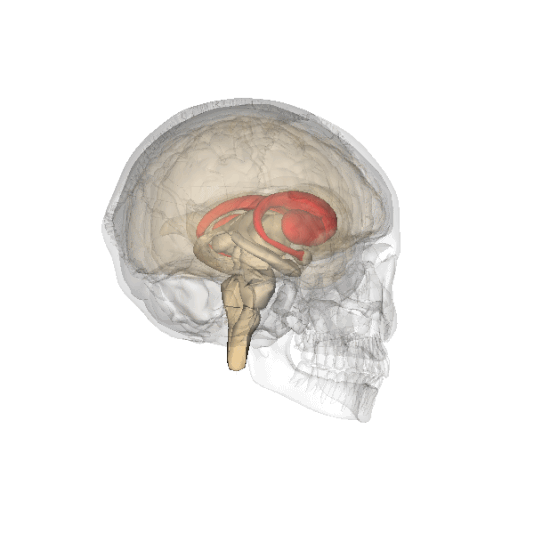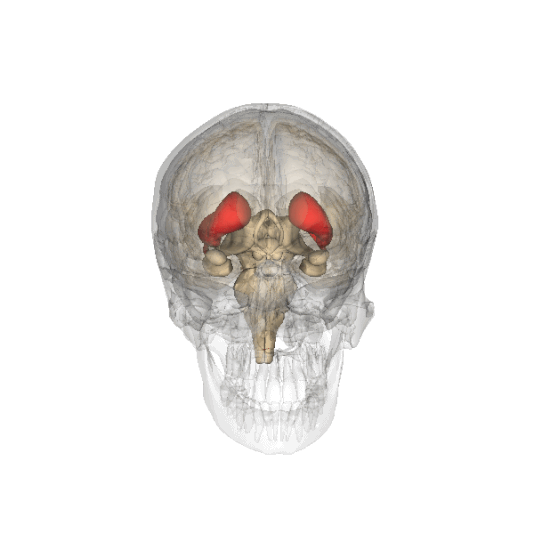
Az emberi agy csíkozott teste.
Striatum* — az agy egy része, amely a bazális magokhoz tartozik; a striatum részt vesz az izomtónus, a belső szervek és a viselkedéses reakciók szabályozásában; a striatumot „csíkozott test”-nek is nevezik a szürke és fehér anyag váltakozó csíkos szerkezete miatt.
A DMS neuronális válaszokat mutat a navigációval kapcsolatos döntéshozatal és cselekvés szempontjából, ezért ezt az agyterületet részletesebben kell tanulmányozni.
A kutatás eredményei
A csíkozott testben (DMS) az ego-centális térbeli információ jelenlétének/hiányának meghatározásához 4 hím patkányba legfeljebb 16 tetrodot (speciális elektródák, amelyeket az agy megfelelő területeihez csatlakoztatnak) ültettek, amelyek a DMS-re irányultak (1a).
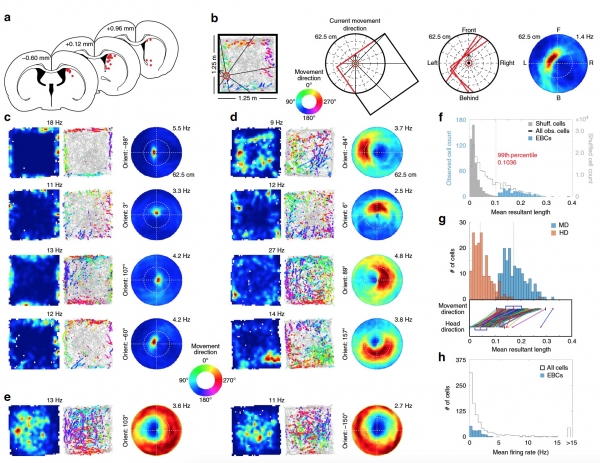
1. kép: A csíkozott test sejtjeinek reakciója a környezet határvonalaira az ego-centális referenciakeretben.
A 1. kép magyarázatai:több mint — a tetrodok helyei;
b — ego-centális határvonal térkép;
a — allo-centális térbeli térképek (4 négyzet balra), a sejtválaszok csúcspozícióinak színezett ábrázolása és ego-centális térképek (4 négyzet jobbra) az EBC sejtjeinek különböző orientációk és a patkány és a fal közötti távolságok alapján;
d — mint a 1c, de az EBC esetében, preferált távolságokkal, amelyek távolabb vannak az állattól;
e — mint a 1c, de két visszafelé EBC-vel;
f — a megfigyelt sejtek átlagos eredményhosszának eloszlása;
g — az EBC átlagos eredményhosszának eloszlása a mozgás irányával és a fej irányával használva;
h — a sejtek (minden és EBC) átlagos válaszreakciójának eloszlása.
Összesen 44 kísérletet végeztek, amikor a patkányok véletlenszerűen szétszórt ételt gyűjtöttek egy számukra ismert térben (nyílt, nem labirintusban). Ennek eredményeként 939 sejtet rögzítettek. Az összegyűjtött adatok alapján 31 fejirányú sejt (HDC) jelenlétét állapították meg, azonban csak egy kis részük, pontosabban 19 sejt rendelkezett allocentrikus térbeli korrelátumokkal. Ezeknek a sejteknek a tevékenységét, amely a környezeti peremre volt korlátozva, csak akkor figyelték meg, amikor a patkány a tesztkamra falai mentén mozgott, ami ego-központú térbeli határkódolási sémát sugall.
Az ego-központú reprezentációs lehetőségek értékelésére a sejtek csúcsaktivitásainak alapján ego-központú térbeli határok (1b), amelyek illusztrálják a határok orientációját és távolságát a patkány mozgásának irányához képest, nem a fejének helyzetéhez (összehasonlítás 1g).
A rögzített sejtek 18%-a (171 a 939-ből) jelentős válaszreakciót mutatott, amikor a kamra határa meghatározott helyzetben és orientációban volt a kísérleti alanyhoz képest (1f). A tudósok ezeket ego-központú határsejteknek (EBC) nevezték el. egocentric boundary cells). Az ilyen sejtek száma a kísérleti alanyoknál 15 és 70 között változott, átlagosan 42,75 volt (1c, 1d).
Az ego-központú határsejtek között akadtak olyanok is, melyek aktivitása csökkent a kamra határaira válaszolva. Összesen 49 volt belőlük, és őket visszafelé EBC-nek (iEBC) nevezték el. Az EBC és iEBC sejtek reakciós átlaga (akciós potenciáluk) meglehetősen alacsony volt — 1,26 ± 0,09 Hz (1h).
Az EBC sejtek populációja reagál a kamra határának minden orientációs és helyzeti változatára a kísérleti alanyhoz képest, azonban a preferált orientáció eloszlása bimodális, csúcsokkal, amelyek 180°-ra helyezkednek el egymással szemben, az állat mindkét oldalán (-68° és 112°), és enyhén elmozdultak a hosszú tengelyre merőlegesen 22°-kal (2d).
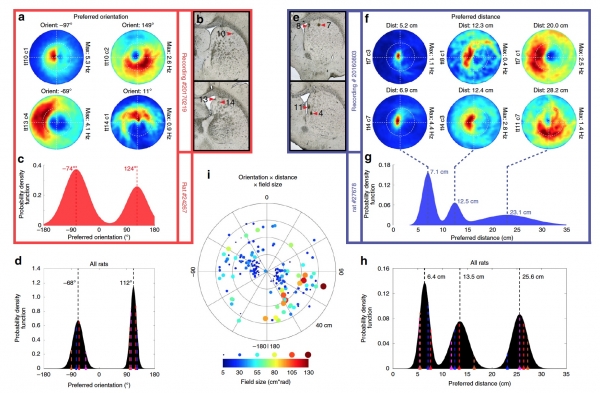
2. számú ábra: A preferált orientáció és távolság az egocentrikus határsejtek (EBC) válaszreakciójához.
A 2. számú ábrához tartozó magyarázatok:a — egocentrikus határ térképek négy, egyidőben vizsgált EBC-hez, a különböző preferált orientációkkal, amelyek mindegyik grafikon felett találhatók;
b — a tetódok elhelyezése a sejtek szerint 2a (a számok a tetód számát jelölik);
a — a preferált orientációk valószínűségi eloszlása az összes EBC esetében egy patkányban;
d — a preferált orientációk valószínűségi eloszlása az összes patkány EBC-jén;
e — a tetódok elhelyezése a megjelenített sejtekhez viszonyítva 2f;
f — egocentrikus határ térképek hat, egyidőben rögzített EBC-hez, a különböző preferált távolságokkal, amelyek mindegyik grafikon felett találhatók;
g — a preferált távolság valószínűségi eloszlása az összes EBC esetében egy patkányban;
h — a preferált távolság valószínűségi eloszlása az összes patkány EBC-jén;
i — pólusdiagram a preferált távolságról és orientációról az összes EBC esetében, a tér mérete színekkel és a pontok átmérőjével ábrázolva.
A preferált határig távolság eloszlása három csúcsot tartalmazott: 6.4, 13.5 és 25.6 cm, jelezve három különböző preferált távolságot az EBC-k között (2f—2h), amelyek fontosak lehetnek a hierarchikus navigációs keresési stratégiák szempontjából. Az EBC receptív mezőinek mérete a preferált távolság növekedésével nőtt (2i), ami arra utal, hogy az egocentrikus határbesorolás pontossága növekszik a fal és a kísérleti alany közti távolság csökkentésével.
A preferált orientációban és távolságban nem volt egyértelmű topográfia, mivel az aktív EBC-k különböző orientációkkal és távolságokkal a falhoz viszonyítva ugyanazon a tetódon jelentek meg (2a, 2b, 2e és 2f).
Azt is megállapították, hogy az EBC-k következetesen reagálnak a tér határaira (a kamra falai) bármilyen teszthelyzetben. Annak megerősítésére, hogy az EBC-k a kamra helyi hatáira, nem pedig távoli jellemzőire reagálnak, a tudósok 45°-kal „elforgatták” a kamra elhelyezkedését, és néhány falat feketére festettek, így az eltért a korábban használt tesztekhez képest.
Adatok gyűltek össze a hagyományos tesztkamrában és a forgatott verzióban is. A tesztkamra eltérése ellenére az EBC alanyok számára minden preferált tájolás és a falakhoz viszonyított távolság változatlan maradt.
Figyelembe véve a szögeket, megvizsgálták azt a lehetőséget is, hogy az EBC egyedileg kódolja ezeket a helyi környezeti attribútumokat. Azáltal, hogy kiemelték a reakciót a sarkok közelében és a fal középső részén, az EBC sejtek egy részhalmazát (n = 16; 9,4%) azonosították, amelyek fokozott reakciót mutattak a sarkokra.
Így közbenső következtetésként megállapítható, hogy az EBC sejtek milyen jól reagálnak a kamra peremére, azaz a tesztkamra falaira és sarkaira.
A tudósok ezt követően azt vizsgálták, hogy az EBC sejtek reakciója a nyitott térre (a labirintusból mentes tesztaréna, azaz egyszerűen 4 fal) az eltérő teszthelyiség méreteknél azonos-e. Három próbát végeztek, mindegyiknél a falak hossza 50 cm-rel különbözött az előzőtől.
Függetlenül a tesztkamra méreteitől, az EBC sejtek hasonló távolságra és tájolásra reagáltak a határok közelében, ami azt jelzi, hogy a reakció nem méretarányos a környezet méretének függvényében.
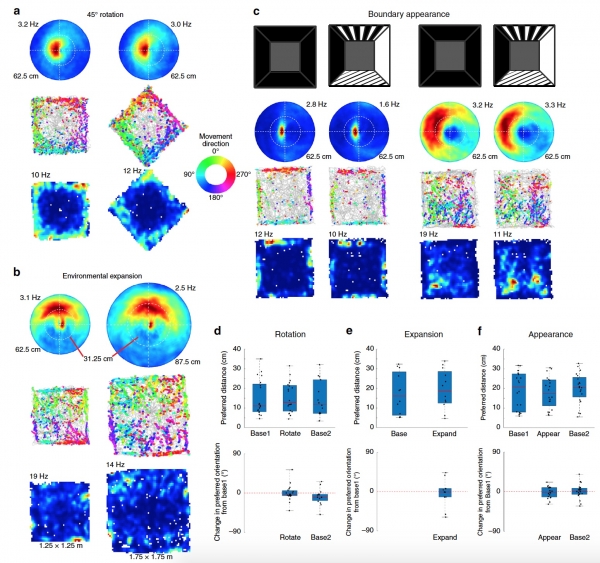
3. számú kép: az EBC sejtek stabil reakciója a tér határaira.
A 3. számú kép magyarázata:több mint — EBC egeocentrikus térképei normál körülmények között (balra) és 45°-os forgatású tesztkameránál (jobbra);
b — EBC egeocentrikus térképei 1,25 x 1,25 m méretű kamerához (balra) és a nagyobb, 1,75 x 1,75 m-es kamerához (jobbra);
a — EBC egeocentrikus térképei hagyományos fekete falú kameránál (balra) és mintás falú kameránál (jobbra);
d—f — a preferált távolság grafikonja (felül) és a preferált tájolás változása az alapvonalhoz képest (alul).
Mivel a csíkolt test a látókéreg több területéről kap információt a környezetéről, a tudósok azt is ellenőrizték, hogy a falak külseje (3s) hogyan befolyásolja az EBC sejtek reakcióját.
A tér határainak megjelenésének megváltoztatása semmilyen hatással nem volt az EBC sejtek reakciójára és a reakcióhoz szükséges távolságra és tájolásra.
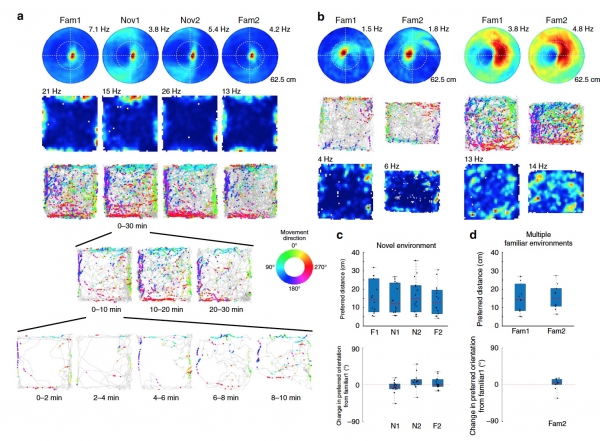
4. számú kép: az EBC sejtek reakciójának stabilitása a környezettől függetlenül.
A kép 4. magyarázata:több mint — egocentrikus térképek az EBC számára a megszokott (balra) és új (jobbra) környezetben;
b — egocentrikus térképek az EBC számára, azonos környezetben, de időbeli eltéréssel;
a — a preferált távolság grafikonja (felül) és a preferált orientáció változása az alapvonalhoz képest (alul) új (ismeretlen) környezetekben;
d — a preferált távolság grafikonja (felül) és a preferált orientáció változása az alapvonalhoz képest (alul) korábban tanulmányozott (ismerős) környezetekben.
Azt is megállapították, hogy az EBC sejtek reakciója, akárcsak a szükséges orientáció és távolság a kísérleti alanyhoz képest, nem változik az idő múlásával.
Ezért a "tudás" tesztet ugyanabban a tesztkamrában végezték. Azt is szükséges volt ellenőrizni, hogy mi a különbség az EBC reakciója között a jól ismert és az új körülményekre. Ehhez több próbát végeztek, amikor az egerek a korábban már ismert kamrát tanulmányozták, majd követték az új, nyitott terekből álló kamrákat.
Ahogy már kitalálta, az EBC sejtek reakciója + a szükséges orientáció/távolság változatlan maradt az új kamrákban (4a, 4c).
Így az EBC reakciója stabil képet biztosít a környezet határozatairól a kísérleti alany szempontjából, mindenféle környezetben, függetlenül a falak megjelenésétől, a tesztkamra területétől, annak mozgatásától és a kísérleti alany által a kamrában eltöltött időtől.
A kutatás részleteivel való alaposabb megismerkedéshez javaslom, hogy nézze meg a és hozzá.
Epilógus
Ebben a munkában a tudósoknak sikerült a gyakorlatban megerősíteniük az egocentrikus környezeti reprezentáció elméletét, ami rendkívül fontos a térbeli tájékozódás szempontjából. Bizonyították, hogy az allocentrikus térbeli reprezentáció és a tényleges cselekvés között létezik egy köztes folyamat, amelyben bizonyos sávos test sejtek vesznek részt, ezeket egocentrikus határok sejteknek (EBC) nevezték. Azt is megállapították, hogy az EBC-k inkább a testmozgás irányításával állnak kapcsolatban, nem csupán a kísérleti alany fejének mozgásával.
Ez a kutatás a térbeli tájékozódás teljes mechanizmusának, valamint annak összetevőinek és változóinak meghatározására irányult. A tudósok szerint ez a munka a jövőben segíthet a navigációs technológiák fejlesztésében autonóm járművek és azon robotok számára, amelyek képesek lesznek megérteni a körülöttük lévő teret, ahogyan mi is tesszük. A kutatók rendkívül elégedettek munkájuk eredményeivel, amelyek megerősítik, hogy érdemes folytatni a kapcsolatok vizsgálatát az agy bizonyos területei és a térbeli navigálás módja között.
Köszönöm a figyelmet, maradjanak kíváncsiak és mindenkinek jó munkahét kívánok, srácok! 🙂
Köszönjük, hogy velünk maradnak. Tetszenek Önöknek a cikkeink? Szeretnének több érdekes anyagot látni? Támogassanak minket rendelés leadásával vagy ismerősöknek való ajánlással. 30% kedvezmény a Habr felhasználóinak az egyedülálló entry-level szervereinkre, amelyet Önöknek találtunk ki: (elérhetők RAID1 és RAID10 opciók, akár 24 magig és 40GB DDR4-ig).
Dell R730xd két alkalommal olcsóbban? Csak nálunk Hollandiában! Dell R420 — 2x E5-2430 2.2GHz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — 99 dollártól! Olvasd el ezt
Forrás: habr.com
