

De wereld om ons heen is gevuld met allerlei informatie die onze hersenen continu verwerken. Ze krijgen deze informatie via de zintuigen, waarbij elk zintuig verantwoordelijk is voor zijn deel van de signalen: ogen (gezicht), tong (smaak), neus (reuk), huid (gevoel), evenwichtsorgaan (evenwicht, positie in de ruimte en gewicht) en oren (geluid). Door signals van al deze zintuigen samen te voegen, kan ons brein een nauwkeurige weergave van de omgeving opbouwen. Maar lang niet alle aspecten van de verwerking van externe signalen zijn ons bekend. Een van die mysteries is het mechanisme voor het lokaliseren van geluidsbronnen.
Wetenschappers van het Speech and Hearing Neuroengineering Lab (technologisch instituut van New Jersey) hebben een nieuw model voorgesteld voor het neurale proces van geluidslokalisatie. Welke processen er precies in onze hersenen plaatsvinden tijdens het waarnemen van geluid, hoe ons brein de positie van de geluidsbron begrijpt en hoe dit onderzoek kan helpen bij het bestrijden van gehoorverlies, leren we van het rapport van de onderzoeksgroep. Laten we beginnen.
De basis van het onderzoek
De informatie die ons brein van de zintuigen ontvangt, verschilt van elkaar, zowel qua bron als qua verwerking. Sommige signalen komen meteen als precieze informatie in onze hersenen binnen, terwijl andere extra rekenprocessen vereisen. Grofweg voelen we aanraking onmiddellijk, maar na het horen van een geluid moeten we nog vinden waar het vandaan komt.
De basis van geluidslokalisatie in het horizontale vlak is interaurale* tijdverschil (ITD van interaural time difference) van geluiden die de oren van de luisteraar bereiken.
Interaurale basis* is de afstand tussen de oren.
In de hersenen is er een specifiek gebied (mediale bovenolifant of MBO) dat verantwoordelijk is voor dit proces. Wanneer een geluidssignaal binnenkomt, wordt in de MBO het interaurale tijdverschil omgezet in de reactietijd van neuronen. De vorm van de snelheidcurven van het uitgangssignaal van de MBO als functie van ITD lijkt op de vorm van de wederzijdse correlatiefunctie van de inkomende signalen voor elk oor.
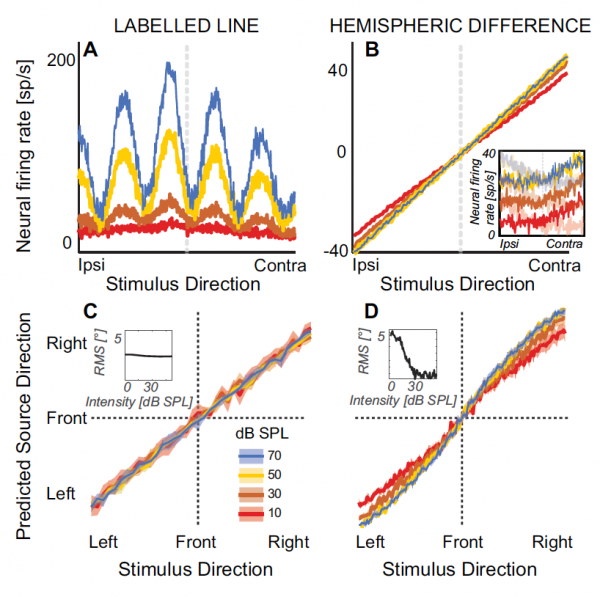
Hoe informatie in het MBO wordt verwerkt en geïnterpreteerd, blijft niet volledig duidelijk, waardoor er verschillende tegenstrijdige theorieën bestaan. De bekendste en feitelijk klassieke theorie van geluidslokalisatie is het model van Jeffress (Lloyd A. Jeffress). Dit is gebaseerd op de gemarkeerde lijn* neuron-detectoren die gevoelig zijn voor binaurale synchronie van neuronale signalen van ieder oor, waarbij elke neuron maximaal gevoelig is voor een specifieke waarde van ITD (1A).
Het principe van de gemarkeerde lijn* is een hypothese die uitlegt hoe verschillende zenuwen, die allemaal dezelfde fysiologische principes gebruiken bij het overbrengen van impulsen langs hun axonen, verschillende sensaties kunnen genereren. Structuurgewijze vergelijkbare zenuwen kunnen verschillende sensorische waarnemingen genereren als ze verbonden zijn met unieke neuronen in het centrale zenuwstelsel die in staat zijn om vergelijkbare zenuwsignalen op verschillende manieren te decoderen.
Afbeelding №1
Dit model lijkt computationeel op neuronale codering, gebaseerd op onbeperkte wederzijdse correlaties van geluiden die beide oren bereiken.
Er bestaat ook een model waarin wordt gesuggereerd dat geluidslokalisatie kan worden gemodelleerd op basis van verschillen in de reactietijd van bepaalde populaties neuronen uit verschillende hersenhelften, dat wil zeggen het model van tussen-hersenhelftasymmetrie (1B).
Tot nu toe was het moeilijk om met zekerheid te zeggen welke van de twee theorieën (modellen) correct is, aangezien ze verschillende afhankelijkheden van geluidslokalisatie van geluidsintensiteit voorspellen.
In het onderzoek dat we vandaag bespreken, hebben de wetenschappers besloten beide modellen te combineren om te begrijpen of de perceptie van geluid is gebaseerd op neuronale codering of op het verschil in reactie van afzonderlijke neuronpopulaties. Er werden verschillende experimenten uitgevoerd waaraan mensen van 18 tot 27 jaar (5 vrouwen en 7 mannen) deelnamen. De audiometrie (meting van het gehoor) van de deelnemers was 25 dB of hoger bij frequenties van 250 tot 8000 Hz. De deelnemers werden geplaatst in een geluidsgeïsoleerde kamer, waar speciaal apparatuur met hoge precisie was gekalibreerd. De deelnemers moesten, na het horen van een geluidsignaal, de richting aangeven waarvandaan het geluid kwam.
Onderzoeksresultaten
Om de afhankelijkheid lateralisatie* van hersenactiviteit van de geluidsintensiteit in reactie op gemarkeerde neuronen zijn gegevens over de reactietijd van neuronen in de laminaire nucleus van de uil gebruikt.
Lateraaliteit* is de asymmetrie van de linker- en rechterhelft van het lichaam.
Om de afhankelijkheid van lateralisatie van hersenactiviteit van de reactietijd van bepaalde populaties neuronen te beoordelen, zijn gegevens over de activiteit van de inferior colliculus van de resusaap gebruikt, waarna verder de verschillen in snelheid van neuronen uit verschillende hersenhelften zijn berekend.
Het model van de gemarkeerde lijn van detectorneuronen suggereert dat bij verminderde geluidsintensiteit de lateralisatie van de waargenomen bron zal convergeren naar gemiddelde waarden die vergelijkbaar zijn voor de verhouding van stille en luide geluiden (1C).
Het model van interhemisferische asymmetrie suggereert op zijn beurt dat bij een vermindering van de geluidsintensiteit tot bijna drempelwaarden de waargenomen lateralisatie naar de middellijn zal verschuiven (1D).
Bij een hogere algemene geluidsintensiteit wordt verondersteld dat lateralisatie invariant is ten opzichte van de intensiteit (invoegingen op 1C en 1D).
Daarom maakt de analyse van hoe geluidsintensiteit de waargenomen geluidsrichting beïnvloedt het mogelijk om de aard van de processen die op dat moment plaatsvinden nauwkeurig te bepalen — neuronen uit één algemene regio of neuronen uit verschillende hemisferen.
Het is duidelijk dat het vermogen van de mens om ITD te onderscheiden kan variëren afhankelijk van de geluidsintensiteit. Wetenschappers geven echter aan dat het moeilijk is om eerdere bevindingen te interpreteren die de gevoeligheid voor ITD en de beoordeling door de luisteraar van de richting van de geluidsbron als een functie van geluidsintensiteit verbinden. Sommige studies stellen dat bij het bereiken van een geluidsintensiteit bij de drempel, de waargenomen lateralisatie van de bron afneemt. Andere studies stellen echter dat er helemaal geen invloed van intensiteit op de perceptie is.
Met andere woorden, wetenschappers 'suggereren' zachtjes dat er in de literatuur onvoldoende informatie is over de relatie tussen ITD, geluidsintensiteit en het bepalen van de richting van de geluidsbron. Er zijn theorieën die bestaan als een soort axioma's, algemeen aanvaard door de wetenschappelijke gemeenschap. Daarom werd besloten om alle theorieën, modellen en mogelijke mechanismen van gehoorperceptie in de praktijk grondig te onderzoeken.
Het eerste experiment werd opgezet op basis van een psychofysische paradigma, waardoor de lateralisatie op basis van ITD als functie van geluidsintensiteit in een groep van tien normaal horende proefpersonen bestudeerd kon worden.
Afbeelding nr. 2
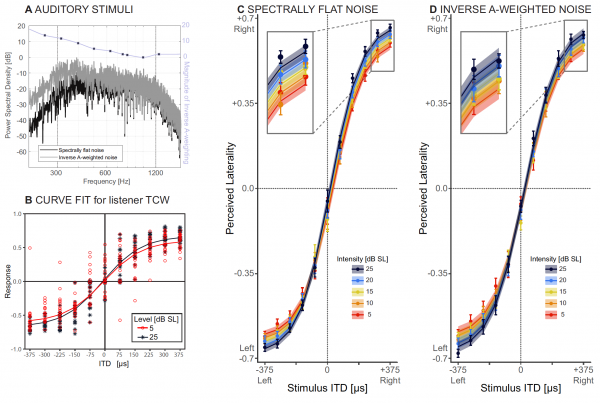
De geluidsbronnen waren speciaal afgesteld om een groot deel van het frequentiebereik te dekken, waarbinnen mensen in staat zijn ITD te herkennen, dat wil zeggen van 300 tot 1200 Hz (2A).
In elk van de proeven moest de luisteraar de veronderstelde lateraliteit aangeven, gemeten als functie van de gevoelslevels, binnen de waarden van ITD van 375 tot 375 ms. Om de invloed van de geluidsintensiteit te bepalen, werd een lineair gemengde-effectmodel (NMLE) gebruikt, dat zowel vaste als willekeurige geluidsintensiteit omvatte.
Grafiek 2B toont de geschatte lateralisatie met spectraal vlak ruis bij twee geluidsintensiteiten voor een representatieve luisteraar. De grafiek 2С toont de ruwe gegevens (cirkels) en de aan het NMLE-model aangepaste (lijnen) van alle luisteraars.
Tabel №1
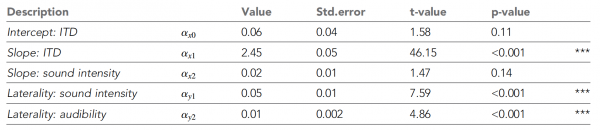
De bovenstaande tabel toont alle parameters van NLME. Het is zichtbaar dat de waargenomen lateraliteit toenam met stijgende ITD, zoals de wetenschappers verwachtten. Met een afname van de geluidsintensiteit verschoof de perceptie steeds meer naar de middellijn (invoeging in de grafiek 2C).
Deze trends werden ondersteund door het NLME-model, dat een significant effect van ITD en geluidsintensiteit op de maximale mate van lateraliteit toonde, ter bevestiging van het model van hemisferische verschillen.
Bovendien had de gemiddelde audiometrische drempels van pure tonen een geringe invloed op de waargenomen lateraliteit. De geluidsintensiteit had echter geen significante invloed op de psychometrische functie.
Het hoofddoel van het tweede experiment was vast te stellen hoe de resultaten van het vorige experiment zouden veranderen rekening houdend met de spectrale kenmerken van de stimuli (geluiden). De noodzaak om spectraal vlakruis bij lage geluidsintensiteit te controleren, komt voort uit het feit dat delen van het spectrum niet hoorbaar kunnen zijn, wat de bepaling van de richting van het geluid kan beïnvloeden. Bijgevolg kan men ten onrechte de resultaten van het eerste experiment beschouwen als het feit dat de breedte van het hoorbare deel van het spectrum kan afnemen met een daling van de geluidsintensiteit.
Daarom werd besloten om nog een experiment uit te voeren, maar deze keer met de toepassing van omgekeerde A-gewogen* geluiden.
A-gewicht* wordt toegepast op geluidsniveaus om de relatieve luidheid te compenseren die door het menselijke oor wordt waargenomen, aangezien het oor minder gevoelig is voor lage frequentiegeluiden. A-gewicht wordt geïmplementeerd door aritmetisch de waarden uit de in octaangebanden vermelde tabel toe te voegen aan de gemeten geluidsdrukniveaus in dB.
In de grafiek 2D onbewerkte gegevens (cirkels) en gegevens die zijn aanbevolen volgens het NMLE-model (lijnen) van alle deelnemers aan het experiment zijn weergegeven.
De data-analyse toonde aan dat wanneer alle delen van het geluid ongeveer even hoorbaar zijn (zowel in het eerste als in het tweede experiment), de waargenomen lateraliteit en helling van de grafiek die de verandering in lateraliteit met ITD verklaart, afneemt met de daling van de geluidsintensiteit.
Op deze manier bevestigden de resultaten van het tweede experiment de resultaten van het eerste. Met andere woorden, het bleek in de praktijk dat het model, voorgesteld door Jeffress in 1948, niet juist is.
Daarom verslechtert de localisatie van geluiden bij afname van de geluidsintensiteit, terwijl Jeffress geloofde dat geluiden door mensen op dezelfde manier worden waargenomen en verwerkt, ongeacht hun intensiteit.
Voor een meer gedetailleerd inzicht in de nuances van het onderzoek raad ik aan om te kijken naar .
Epilog
Theoretische veronderstellingen en de praktische experimenten die deze bevestigen, hebben aangetoond dat de neuronen in de hersenen van zoogdieren met verschillende snelheden worden geactiveerd, afhankelijk van de richting van het geluidssignaal. Vervolgens vergelijkt de hersenen deze snelheden tussen alle neuronen die betrokken zijn bij het proces om dynamisch een kaart van de geluidsomgeving te construeren.
Het model van Jeffress is eigenlijk niet 100% onjuist, aangezien het perfect kan worden gebruikt om de lokalisatie van de geluidsbron bij uilen te beschrijven. Ja, voor uilen maakt de geluidsintensiteit niet uit, ze kunnen de positie van de bron in elk geval bepalen. Echter, dit model werkt niet bij rhesusapen, zoals eerder is aangetoond in experimenten. Daarom kan dit model van Jeffress de lokalisatie van geluiden voor alle levende wezens niet beschrijven.
Experimenten met mensen hebben opnieuw bevestigd dat de lokalisatie van geluiden bij verschillende organismen op verschillende manieren verloopt. Veel van de deelnemers konden de positie van de geluidsbronnen niet correct bepalen vanwege de lage geluidintensiteit.
Wetenschappers denken dat hun werk bepaalde overeenkomsten laat zien tussen hoe we zien en hoe we horen. Beide processen zijn gerelateerd aan de snelheid van neuronen in verschillende delen van de hersenen, evenals aan de beoordeling van dit verschil om zowel de positie van de objecten die we zichtbaar waarnemen in de ruimte als de positie van de bron van het geluid dat we horen te bepalen.
In de toekomst zijn onderzoekers van plan een reeks experimenten uit te voeren om de relatie tussen horen en zien bij mensen beter te onderzoeken, zodat we beter kunnen begrijpen hoe ons brein dynamisch een kaart van de omliggende wereld opbouwt.
Bedankt voor uw aandacht, blijf nieuwsgierig en een fijne werkweek voor iedereen, jongens! 🙂
Bedankt dat je bij ons blijft. Houd je van onze artikelen? Wil je meer interessante inhoud zien? Ondersteun ons door een bestelling te plaatsen of ons aan vrienden aan te bevelen, , 30% korting voor Habr-gebruikers op een unieke variant van entry-level servers, speciaal voor jou ontworpen: (opties beschikbaar met RAID1 en RAID10, tot 24 cores en tot 40GB DDR4).
Dell R730xd voor de helft van de prijs? Alleen bij ons in Nederland! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — vanaf $99! Lees over hoe
Bron: habr.com
