

Pohyb je život. Túto frázu je možné interpretovať ako motiváciu ísť vpred, nezostať na mieste a dosahovať želané, ako aj konštatovanie faktu, že prakticky všetky živé bytosti strávia väčšinu svojho života v pohybe. Aby naše pohyby a presuny v priestore neskončili každý raz s hrčkami na čele a rozbitými malíčkami na nohách, náš mozog využíva uložené „mapy“ okolitého prostredia, ktoré sa nevedome objavujú v momente nášho pohybu. Existuje však názor, že mozog tieto mapy využíva nie z vonku, takpovediac, ale umiestňuje človeka na túto mapu a zbiera údaje pri pohľade z prvej osoby. Túto teóriu sa rozhodli preukázať vedci z Bostonskej univerzity vykonaním série praktických experimentov s laboratórnymi potkanmi. Ako vlastne mozog orientuje v priestore, aké bunky sú pri tom zapojené a akú úlohu zohráva toto výskum pre budúce autonómne vozidlá a roboty? O tom sa dozvieme z prezentácie výskumnej skupiny. Poďme na to.
Základ výskumu
Takže, už pred mnohými rokmi bol stanovený fakt, že hlavným aspektom mozgu zodpovedným za orientáciu v priestore je hippocampus.
Hippocampus sa zapája do mnohých procesov: formovanie emócií, pretransformovanie krátkodobej pamäti na dlhodobú a formovanie priestorovej pamäti. Práve táto posledná je zdrojom tých „máps“, ktoré náš mozog v správny moment vyvoláva pre efektívnejšiu orientáciu v priestore. Inými slovami, v hippocampe sú uložené trojrozmerné neurónové modely priestoru, v ktorom sa nachádza majiteľ mozgu.
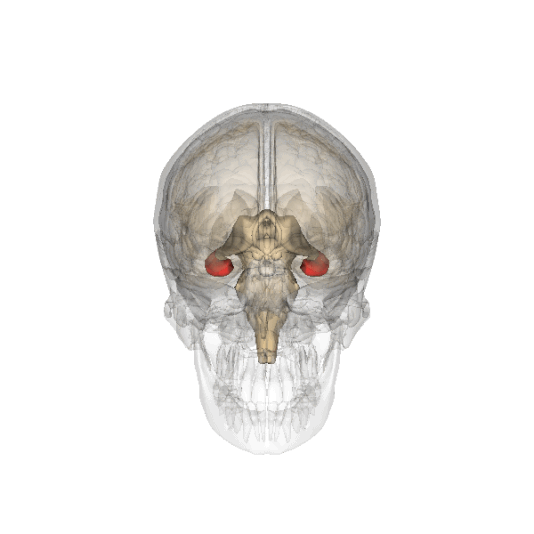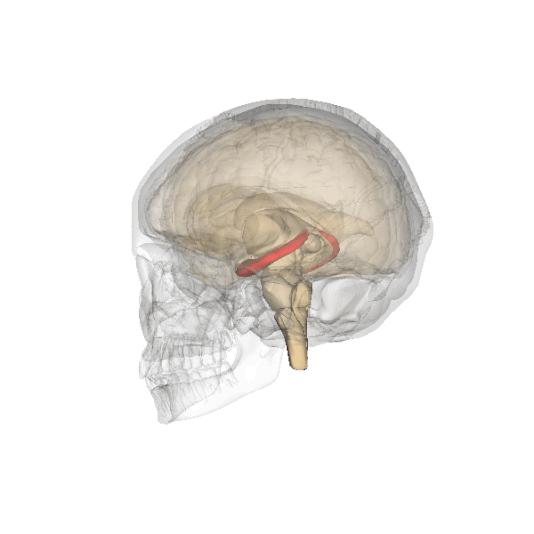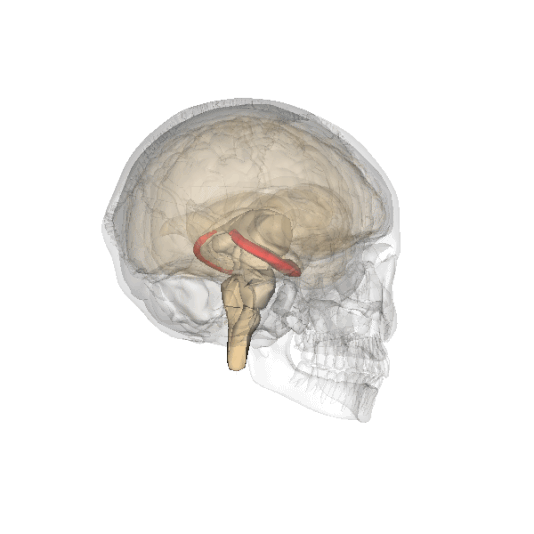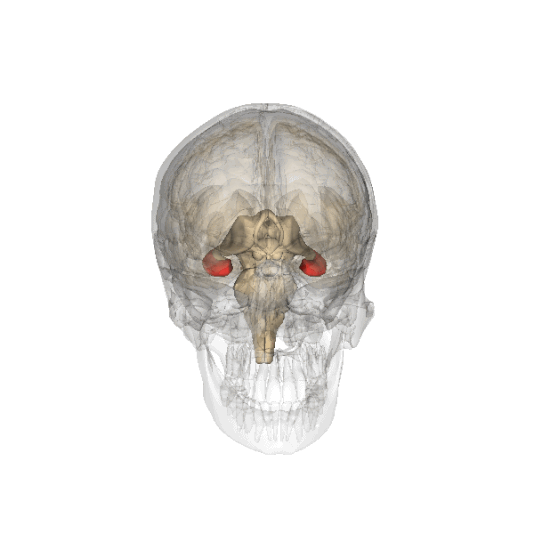
Hippocampus
Existuje teória, ktorá tvrdí, že medzi skutočnou navigáciou a mapami z hippocampu je medzistupeň - transformácia týchto máp do pohľadu z prvej osoby. To znamená, že človek sa snaží pochopiť, kde čo je umiestnené, nie vo všeobecnosti (ako vidíme na skutočných mapách), ale kde bude čo umiestnené relatívne k nemu samému (ako funkcia „pohľad na ulice“ v Google Maps).
Autori skúmaného diela zdôrazňujú nasledujúce: Kognitívne mapy okolia sú kódované v hipokampálnej formácii v allocentrickom systéme, ale motorika (samotné pohyby) sú reprezentované v egocentrickom systéme.
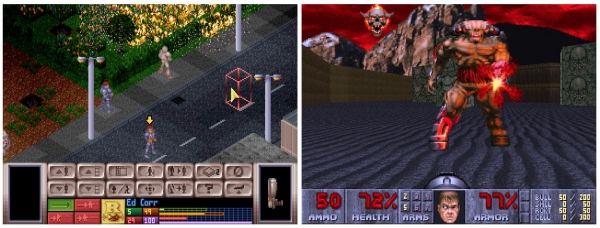
UFO: Enemy Unknown (allocentrický systém) a DOOM (egocentrický systém).
Rozdiel medzi allocentrickými a egocentrickými systémami pripomína rozdiel medzi hrami z pohľadu tretej osoby (alebo z bočného, horného pohľadu atď.) a hrami z pohľadu prvej osoby. V prvom prípade je pre nás dôležité samotné okolie, v druhom — naša pozícia voči tomuto okoliu. Takže allocentrické navigačné plány musia byť prevedené do egocentrického systému pre ich praktickú realizáciu, t.j. pohyb v priestore.
Výskumníci sa domnievajú, že dorzomedialny striatum (DMS)* zohráva kľúčovú úlohu v vyššie opísanom procese.
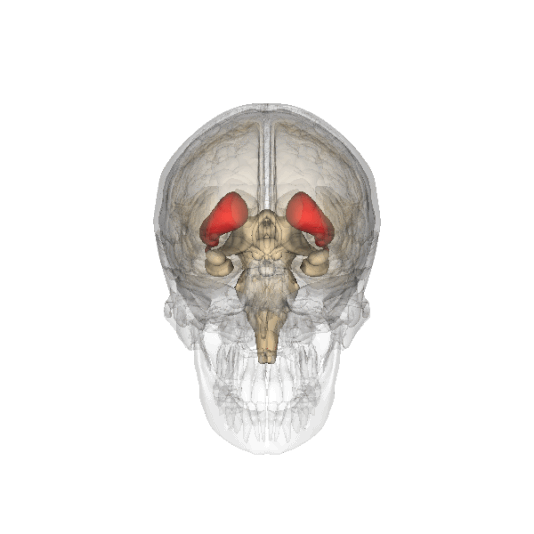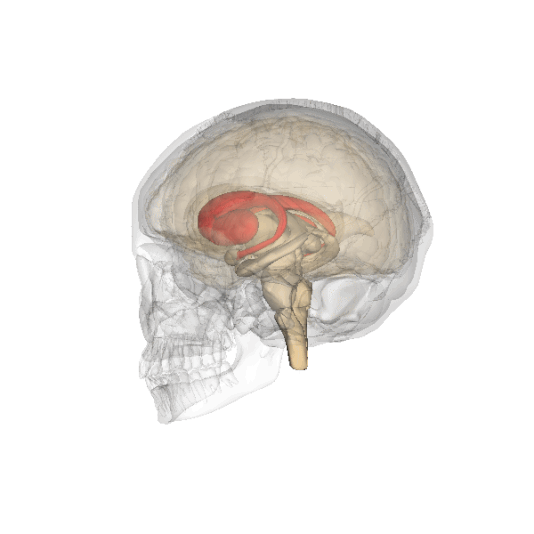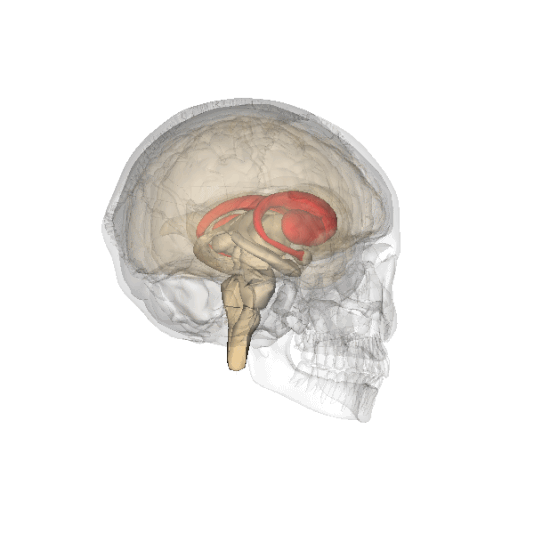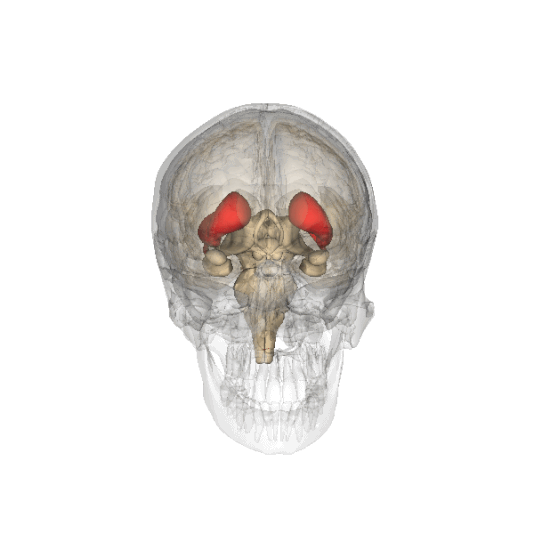
Pásikové telo mozgu človeka.
Striatum* — časť mozgu, ktorá patrí k bazálnym gangliám; striatum sa podieľa na regulácii svalového tonusu, vnútorných orgánov a behaviorálnych reakcií; striatum sa nazýva aj „pásikové telo“ vďaka jeho štruktúre z striedajúcich sa pásov šedej a bielej hmoty.
DMS preukazuje neurónové odpovede spojené s prijímaním rozhodnutí a vykonávaním akcií týkajúcich sa navigácie v priestore, preto by tento úsek mozgu mal byť preskúmaný podrobnejšie.
Výsledky štúdie
Aby sa určila prítomnosť/absencia egocentrických priestorových informácií v pásikových telách (DMS), 4 samcom potkanov implantovali až 16 tetrodov (špeciálne elektródy pripojené k požadovaným oblastiam mozgu) zameraných na DMS (1a).
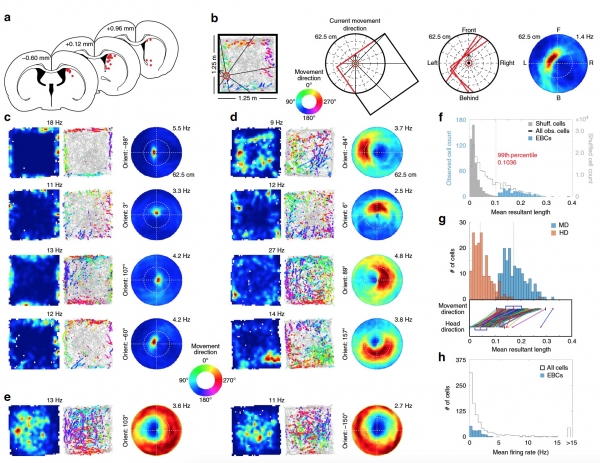
Obrázok č. 1: reakcia buniek pásikového tela na hranice okolia v egocentrickom systéme referencie.
Vysvetlenia k obrázku č. 1:a — body umiestnenia tetrodov;
b — egocentrická mapa hraníc;
s — allocentrické priestorové mapy (4 štvorce naľavo), grafy trajektórií s farebným kódovaním polôh vrcholov reakcií buniek vo vzťahu k pozícii tela a egocentrické mapy (4 štvorce napravo) na základe reakcií buniek EBC pri rôznych orientáciách a vzdialenosti medzi potkanom a stenou;
d — ako aj na 1c, ale pre EBC s preferovanými vzdialenosťami, vzdialenými od zvieraťa;
e — ako aj na 1c, ale pre dva spätné EBC;
f — rozloženie priemernej výslednej dĺžky pre pozorované bunky;
g — rozloženie priemernej výslednej dĺžky pre EBC s využitím smeru pohybu a smeru hlavy;
h — rozloženie priemernej reakcie buniek (všetkých a EBC).
Bolo vykonaných 44 experimentov, kde potkany zbierali náhodne rozptýlené jedlo vo známom prostredí (otvorenom, nie v bludisku). Výsledkom bolo zaznamenanie 939 buniek. Z nazbieraných údajov bolo identifikovaných 31 buniek smeru hlavy (HDC), avšak len malá časť buniek, konkrétne 19, mala allocentrické priestorové koreláty. Aktivita týchto buniek, obmedzená obvodom okolia, sa pozorovala iba počas pohybu potkana pozdĺž stien testovacej komory, čo naznačuje egocentrické schémy kódovania hraníc priestoru.
Na hodnotenie možností takéhoto egocentrického zobrazenia na základe vrcholových parametrov aktivity buniek boli vytvorené egocentrické mapy hraníc (1b), ktoré ilustrujú orientáciu a vzdialenosť hraníc vzhľadom na smer pohybu potkana, a nie na polohu jeho hlavy (porovnanie na 1g).
18 % zo zaznamenaných buniek (171 z 939) vykazovalo výraznú reakciu, keď hranica komory zaujímala určité umiestnenie a orientáciu vzhľadom na podrobného (1f). Vedci nazvali tieto bunky bunkami egocentrických hraníc (EBC — egocentric boundary cells). Počet takýchto buniek u subjektov sa pohyboval od 15 do 70 s priemerným ukazovateľom 42,75 (1c, 1d).
Medzi bunkami egocentrických hraníc sa nachádzali aj také, ktorých aktivita sa znižovala v reakcii na hranice komory. Celkom ich bolo 49 a nazvali ich spätné EBC (iEBC). Priemerný reagovací parameter buniek (ich akčný potenciál) u EBC a iEBC bol pomerne nízky — 1,26 ± 0,09 Hz (1h).
Populácia buniek EBC reaguje na všetky varianty orientácie a polohy hranice komory vzhľadom na subjekt, ale rozloženie preferovanej orientácie je bimodálne s vrcholmi umiestnenými 180° oproti sebe na oboch stranách zvieraťa (-68° a 112°), pričom je mierne posunuté od kolmé osi dlhého osí zvieraťa o 22° (2d).
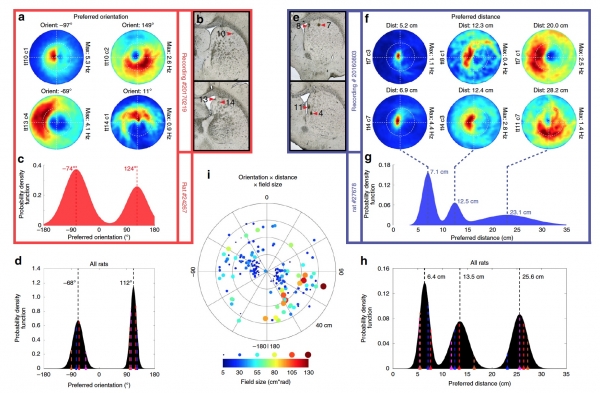
Obrázok č. 2: preferovaná orientácia a vzdialenosť pre reakciu egocentrických hranicových buniek (EBC).
Vysvetlenia k obrázku č. 2:a — egocentrické mapy hraníc pre štyri súčasne skúmané EBC s rôznymi preferovanými orientáciami, uvedenými nad každým grafom;
b — umiestnenie tetraódov podľa buniek z 2a (čísla označujú číslo tetraódu);
s — rozdelenie pravdepodobností preferovaných orientácií pre všetky EBC jedného potkana;
d — rozdelenie pravdepodobností preferovaných orientácií pre EBC všetkých potkanov;
roky — umiestnenie tetraódov pre bunky, zobrazené na 2f;
f — egocentrické mapy hraníc pre šesť súčasne zaznamenaných EBC s rôznymi preferovanými vzdialenosťami, uvedenými nad každým grafom;
g — rozdelenie pravdepodobností preferovanej vzdialenosti pre všetky EBC jedného potkana;
h — rozdelenie pravdepodobností preferovanej vzdialenosti pre EBC všetkých potkanov;
i — polárny graf preferovanej vzdialenosti a preferovanej orientácie pre všetky EBC, s veľkosťou priestoru zobrazenou farbou a priemerom bodov.
Rozdelenie preferovanej vzdialenosti k hranici malo tri vrcholy: 6.4, 13.5 a 25.6 cm, čo naznačuje prítomnosť troch rôznych preferovaných vzdialeností medzi EBC (2f—2h), ktoré môžu byť dôležité pre stratégiu hierarchického navigačného vyhľadávania. Veľkosť receptívnych polí EBC sa zvyšovala v závislosti od preferovanej vzdialenosti (2i), čo naznačuje, že sa zlepšovala presnosť egocentrického zobrazenia hraníc so znížením vzdialenosti medzi stenou a subjektom.
Ako v preferovanej orientácii, tak aj vo vzdialenosti chýbala jasná topografia, pretože aktívne EBC subjektu s rôznou orientáciou a vzdialenosťou od steny sa objavovali na tom istom tetraóde (2a, 2b, 2e a 2f).
Rovnako sa zistilo, že EBC stabilne reagujú na hranice priestoru (steny komory) vo všetkých variantoch testovacích komôr. Aby sa potvrdilo, že EBC reagujú na lokálne hranice komory a nie na jej distálne charakteristiky, vedci „otočili“ polohu komory o 45° a urobili niektoré steny čiernymi, čím ju odlíšili od používaných v predchádzajúcich testoch.
Boli zhromaždené údaje ako v bežnej testovacej komore, tak aj v otočnej. Napriek zmene testovacej komory zostali všetky preferované orientácie a vzdialenosti voči stenám pre EBC subjektov nezmenené.
Zohľadňujúc význam uhlov, bola tiež preskúmaná možnosť, že EBC unikátne kóduje tieto lokálne atribúty prostredia. Vydelením rozdielu medzi reakciou blízko uhlov a reakciou pri prostrednej stene bolo identifikované podmnožstvo buniek EBC (n = 16; 9,4%), ktoré vykazujú zvýšenú reakciu na uhly.
Týmto spôsobom je možné urobiť predbežný záver, že práve bunky EBC výborne reagujú na obvod komory, teda na steny testovacej komory a na jej uhly.
Ďalej vedci preskúmali, či je reakcia buniek EBC na otvorený priestor (testovacia aréna bez labyrintu, t.j. jednoducho 4 steny) rovnaká pri rôznych variantoch plochy testovacej miestnosti. Boli vykonané 3 rovnania, pričom dĺžka stien sa v každom z nich líšila od predchádzajúcich o 50 cm.
Bez ohľadu na veľkosti testovacej komory EBC reagovali na jej hranice na rovnakej vzdialenosti a orientácii voči subjektu. Toto naznačuje absenciu škálovania reakcie v závislosti od veľkosti prostredia.
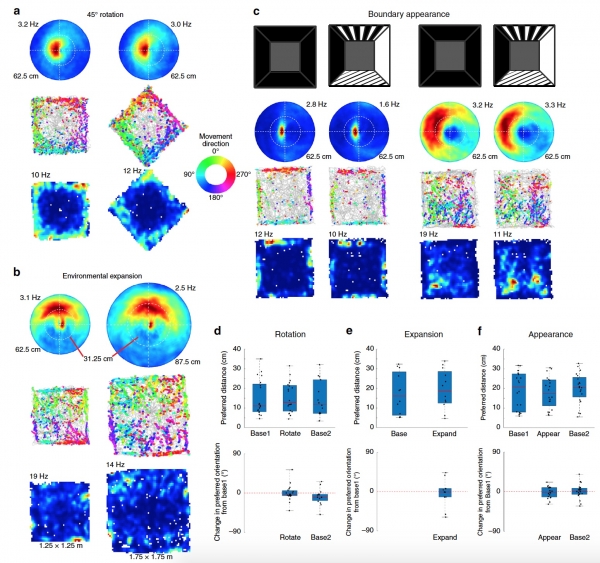
Obrázok č. 3: stabilná reakcia buniek EBC na hranice priestoru.
Vysvetlenia k obrázku č. 3:a — egocentrické mapy EBC za normálnych podmienok (vľavo) a pri otočení testovacej komory o 45° (vpravo);
b — egocentrické mapy EBC pre komoru s rozmermi 1,25 x 1,25 m (vľavo) a pre zväčšenú komoru 1,75 x 1,75 m (vpravo);
s — egocentrické mapy EBC pri bežných čiernych stenách komory (vľavo) a pri vzorovaných stenách (vpravo);
d—f — grafy preferovanej vzdialenosti (hore) a zmeny preferovanej orientácie voči základnej línii (dole).
Keďže pruhované telo získava informácie o okolí z viacerých oblastí zrakovej kôry mozgu, vedci tiež skontrolovali, či vzhľad stien (3s) komory ovplyvňuje reakciu buniek EBC.
Zmena vzhľadu hraníc priestoru nijako neovplyvnila reakciu buniek EBC a potrebné vzdialenosti a orientácie voči subjektu.
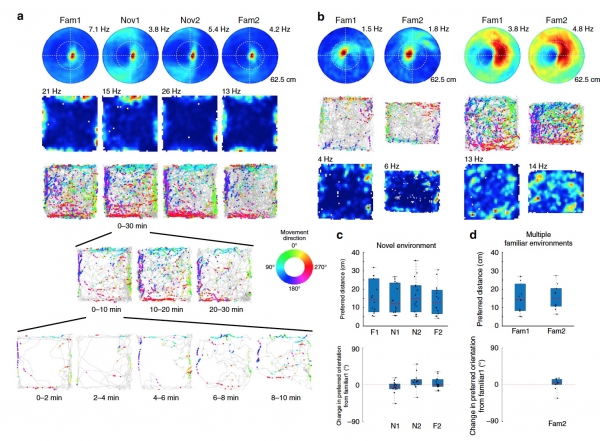
Obrázok č. 4: stabilita reakcie buniek EBC nezávisle od prostredia.
Vysvetlenia k obrázku č. 4:a — egocentrické mapy pre EBC v známej (vľavo) a novej (vpravo) prostredí;
b — egocentrické mapy pre EBC získané v rovnakom prostredí, ale s časovým odstupom;
s — grafy preferovanej vzdialenosti (hore) a zmeny preferovanej orientácie voči základnej línii (dole) pre nové (neznáme) prostredia;
d — grafy preferovanej vzdialenosti (hore) a zmeny preferovanej orientácie voči základnej línii (dole) pre predtým skúmané (známe) prostredia.
Bolo tiež zistené, že reakcia buniek EBC, rovnako ako potrebná orientácia a vzdialenosť voči experimentálnemu subjektu, sa s časom nemenia.
Avšak tento "časový" test sa konal v tej istej testovacej komore. Tiež bolo potrebné overiť, aký je rozdiel medzi reakciou EBC na známe podmienky a na nové. Na tento účel sa uskutočnilo niekoľko pokusov, keď potkany skúmali komoru, ktorú už poznajú z predchádzajúcich testov, a následne nové komory s otvoreným priestorom.
Ako už iste tušíte, reakcia buniek EBC + požadovaná orientácia/vzdialenosť zostali nezmenené v nových komorách (4a, 4c).
Týmto spôsobom reakcia EBC poskytuje stabilné zobrazenie hraníc okolia voči experimentálnemu subjektu vo všetkých typoch tohto prostredia, bez ohľadu na vzhľad stien, plochu testovacej komory, jej pohyby a čas strávený subjektom v komore.
Pre podrobnejšie oboznámenie s nuansami výskumu odporúčam pozrieť sa do a k nej.
Epilog
V tejto práci sa vedcom podarilo prakticky potvrdiť teóriu o egocentrickom zobrazení okolia, čo je mimoriadne dôležité pre orientáciu v priestore. Dokázali, že medzi allocentrickým priestorovým zobrazením a skutočným konaním existuje medzičlánok, do ktorého sú zapojené určité bunky pruhovitého tela, nazývané bunky egocentrických hraníc (EBC). Bolo tiež zistené, že EBC sú viac spojené s riadením pohybu celého tela, a nie len hlavy subjektov.
Táto štúdia bola zameraná na určenie komplexného mechanizmu orientácie v priestore, všetkých jeho komponentov a premenných. Tento prístup, podľa vedcov, ďalej pomôže vylepšiť navigačné technológie pre autonómne vozidlá a roboty, ktoré budú schopné chápať svoje okolie rovnakým spôsobom, akým to robíme my. Výskumníci sú nesmierne potešení výsledkami svojej práce, ktoré poskytujú základ pre pokračovanie v štúdiu vzťahov medzi určitými oblasťami mozgu a tým, ako sa realizuje navigácia v priestore.
Ďakujem za pozornosť, ostávajte zvedaví a prajem všetkým dobrý pracovný týždeň, kamaráti! 🙂
Ďakujeme, že s nami zostávate. Páčia sa vám naše články? Chcete vidieť viac zaujímavých materiálov? Podporte nás objednaním alebo odporúčaním priateľom, 30% zľava pre používateľov Chabra na unikátny ekvivalent entry-level serverov, ktorý sme pre vás vytvorili: (k dispozícii varianty s RAID1 a RAID10, až 24 jadier a až 40GB DDR4).
Dell R730xd za polovicu? Len u nás v Holandsku! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — od 99 dolárov! Prečítajte si o tom
Zdroj: habr.com
