

Čo majú spoločné Wolverine, Deadpool a medúza? Všetci majú úžasnú vlastnosť – regeneráciu. Samozrejme, v komixoch a filmoch je táto schopnosť, rozšírená medzi veľmi obmedzeným počtom reálnych živých organizmov, mierne (a niekedy aj značne) prehnaná, avšak zostáva celkom reálnou. A to, čo je reálne, sa dá vysvetliť, čím sa rozhodli zaoberať vo svojom novom výskume vedci z univerzity Tohoku (Japonsko). Aké bunkové procesy v tele medúzy súvisia s regeneráciou, ako prebieha tento proces a aké ďalšie super-schopnosti majú tieto želatínové bytosti? O tom nám povie prednáška výskumnej skupiny. Poďme na to.
Základ výskumu
Predovšetkým vedci vysvetľujú, prečo sa rozhodli sústrediť svoju pozornosť práve na medúzy. Faktom je, že väčšina výskumov v oblasti biológie sa koná za účasti takzvaných modelových organizmov: myší, ovocných muškách, červoch, rybách a pod. No na našej planéte žije milióny druhov, z ktorých každý má určité jedinečné schopnosti. Preto nie je možné plne zhodnotiť proces bunkovej regenerácie, ak sa študuje len jeden druh a predpokladá, že skúmaný mechanizmus bude spoločný pre všetkých existujúcich na Zemi.
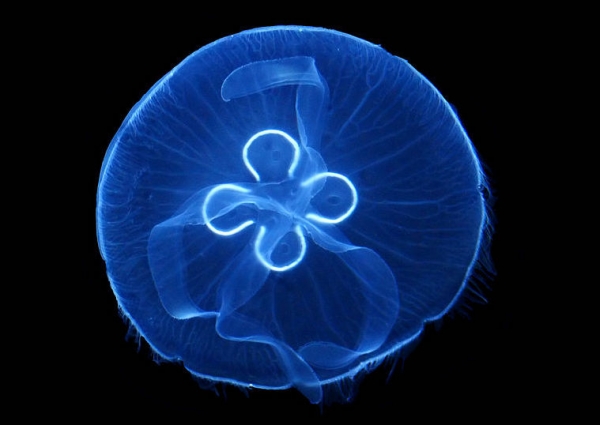
Pokiaľ ide o medúzy, tieto bytosti svojím vzhľadom už dávno naznačujú svoju jedinečnosť, čo musí pritiahnuť pozornosť vedcov. Preto, skôr ako sa pustím do podrobností samotného výskumu, zoznámil som sa s jeho hlavným hrdinom.
Slovom „medúza“, ktorým sme zvyknutí označovať tieto bytosti ako také, sa vlastne nazýva len štádium životného cyklu žihľavca z podtypu Medusozoa. Žihľavce dostali toto nezvyčajné meno kvôli prítomnosti v ich organizme žihľavých buniek (cnidocyty), ktoré sa používajú na lov a sebaobranu. Jednoducho povedané, keď vás bodla medúza, môžete za bolesť a utrpenie poďakovať práve týmto bunkám.
Cnidocyty obsahujú cnidocyst — intracelulárnu organelu zodpovednú za „bodajúci“ efekt. Podľa vzhľadu a metódy aplikácie rozlišujeme niekoľko typov cnidocytov, medzi ktorými môžeme vyzdvihnúť:
- penetranty — vlákna so špicatými koncami, ktoré sa zabodávajú do tela obete alebo agresora ako kopije a vpúšťajú neurotoxíny;
- glutínanty — lepkavé a dlhé vlákna, ktoré obklopujú obeť (nie sú to práve najpríjemnejšie objatia);
- volventy — krátke vlákna, v ktorých sa obeť môže ľahko zamotať.
Tento neštandardný spôsob zbrojenia sa vysvetľuje tým, že medúzy, hoci sú pôvabné, nie sú práve najrýchlejšie tvory. Neurotoxín, ktorý sa dostane do tela koristi, okamžite ju paralyzuje, čo medúze poskytuje dostatok času na obedňajšiu prestávku.
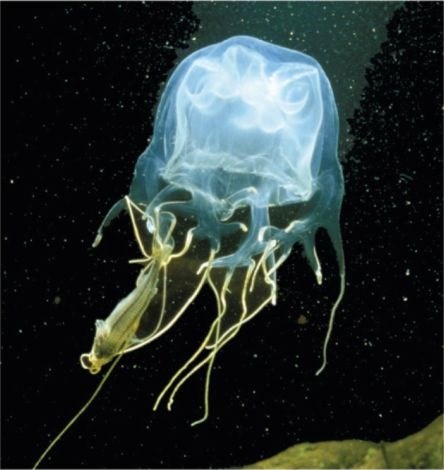
Medúza po úspešnom love.
Okrem nezvyčajného spôsobu lovu a obrany majú medúzy veľmi netradičné rozmnožovanie. Samce produkujú spermie, zatiaľ čo samice — vajíčka, po ich zlúčení sa formujú planuly (larvy), ktoré sa usádzajú na dne. Po čase z larvy vyrastá polyp, z ktorého sa pri dosiahnutí zrelosti doslova odtrhnú mladé medúzy (v skutočnosti ide o klonovanie). Takže existuje niekoľko štádií životného cyklu, jedným z nich je aj medúza alebo meduzoidná generácia.
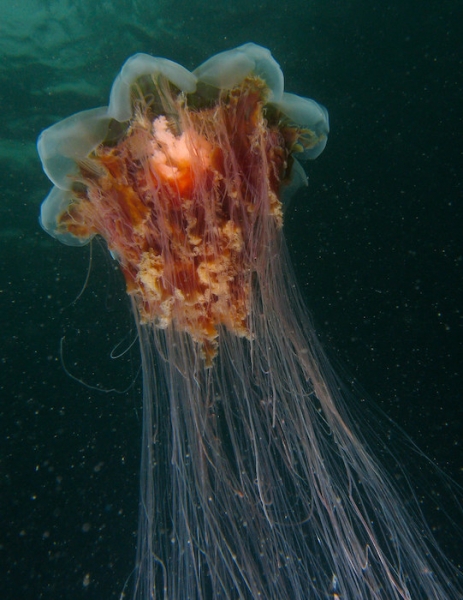
Chlpatá cyanea, tiež známa ako „levia hriava“.
Keby sa chlpatá cyanea opýtala, ako zvýšiť účinnosť lovu, odpovedala by — viacej chapadiel. Celkovo ich je približne 60 (klastre z 15 chapadiel na každom rohu kupoly). Okrem toho sa tento druh medúz považuje za najväčší, keďže priemer kupoly môže dosiahnuť 2 metre, a chapadlá sa počas lovu môžu natiahnuť až na 20 metrov. Našťastie tento druh sa nevyznačuje zvláštnou „jedovatosťou“, a preto nie je smrteľný pre človeka.
Medúza morska, na druhej strane, by k počtu pridala aj kvalitu. Tento druh medúz má tiež 15 chapadiel (3 m dlhých) na každý z štyroch rohov kupoly, ale ich jed je mnohonásobne silnejší ako u ich veľkého príbuzného. Predpokladá sa, že neurotoxín v tele medúzy morska by mohol zabiť 60 ľudí za 3 minúty. Tento hrozný predátor morí obýva pobrežnú zónu severnej Austrálie a Nového Zélandu. Podľa údajov z obdobia medzi 1884 a 1996 zomrelo v Austrálii 63 ľudí, avšak tieto údaje môžu byť nepresné a počet smrteľných stretov človeka s medúzou morska môže byť oveľa vyšší. Podľa údajov z rokov 1991-2004 však len 8 % z 225 prípadov postihnutých muselo byť hospitalizovaných, pričom medzi nimi bol jeden smrteľný výsledok (trojročné dieťa).

Medúza morska
A teraz sa vráťme k dnes skúmanému výskumu.
Z pohľadu buniek je najdôležitejším procesom celého života akéhokoľvek organizmu bunková proliferácia — proces rastu tkanív organizmu prostredníctvom delenia buniek. Počas rastu organizmu tento proces reguluje zväčšovanie rozmerov tela. A keď je organizmus úplne vyvinutý, proliferujúce bunky regulujú fyziologický metabolizmus buniek a nahrádzajú poškodené nové.
Cnidáry, ako príbuzná skupina bilaterálnych a raných vývojových vetiev mnohobunkových organizmov, sa už mnoho rokov používajú na štúdium evolučných procesov. Cnidáry teda nie sú výnimkou v aspektu proliferácie. Napríklad počas embryonálneho vývoja morskej anemóny Nematostella vectensis sa proliferácia buniek koordinuje s organizáciou epitelu a podieľa sa na vývoji chapadiel.
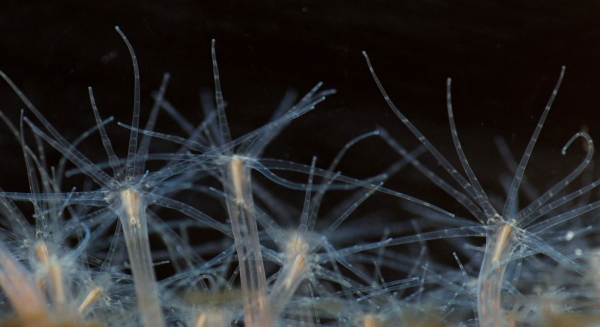
Nematostella vectensis
Okrem iného, cnidáry, ako už vieme, sú známe svojimi regeneračnými schopnosťami. Medzi výskumníkmi sú už celé storočia najobľúbenejšie polypy hydry (rod sladkovodných sedavých živočíchov z triedy hydroidných). Proliferácia, aktivovaná umierajúcimi bunkami, spúšťa proces regenerácie bazálnej hlavy hydry. Samotný názov tohto tvora odkazuje na mytologické stvorenie známe svojou regeneráciou — Lernejska hydra, nad ktorou zvíťazil Herkules.
Hoci sa regeneratívne schopnosti podarilo priradiť k proliferácii, zostáva nejasné, ako presne tento bunkový proces prebieha v normálnych podmienkach v rôznych fázach vývoja organizmu.
Medúzy, ktoré majú zložitý životný cyklus pozostávajúci z dvoch fáz rozmnožovania (vegetatívna a pohlavná), sú výborným modelom na štúdium proliferácie.
V tomto diele zohráva úlohu hlavného skúmaného druhu medúza druhu Cladonema pacificum. Tento druh obýva brehy Japonska. Pôvodne má táto medúza 9 hlavných chapadiel, ktoré sa počas vývoja na dospelú osobu začínajú vetviť a zväčšovať na veľkosti (rovnako ako celé telo). Táto vlastnosť umožňuje podrobne preskúmať všetky mechanizmy, ktoré sa na tomto procese zúčastňujú.
Okrem Cladonema pacificum v štúdii boli skúmané aj iné druhy medúz: Cytaeis uchidae a Rathkea octopunctata.
Výsledky štúdie
Aby sa pochopila priestorová zákonnosť proliferácie buniek v Cladonema medúze, vedci aplikovali farbenie 5-étinyl-2’-deoxyuridínom (EdU), ktoré označuje bunky v S-fáze* alebo bunky, ktoré ju už prekonali.
S-fáza* — fáza bunkového cyklu, v ktorej dochádza k replikácii DNA.
Zohľadňujúc, že Cladonema ostro rastie na veľkosti a prezentuje rozvetvenie chapadiel počas vývoja (1A—1C), môže sa rozdelenie proliferujúcich buniek meniť počas celého zrenia.
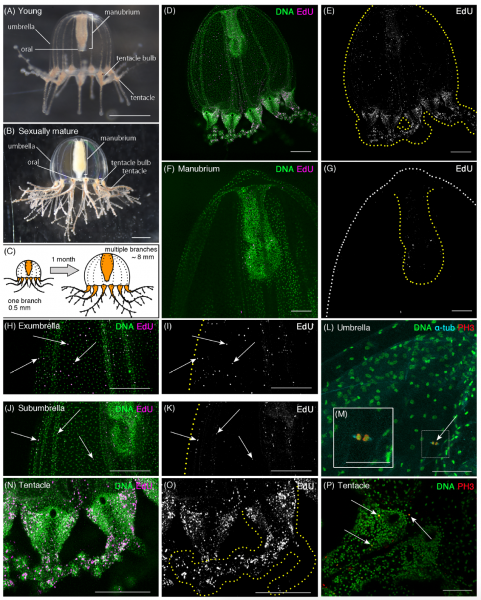
Obrázok č. 1: vlastnosti bunkovej proliferácie u mladých Cladonema.
Vďaka tejto vlastnosti sa podarilo preskúmať mechanizmus proliferácie buniek u mladých (1. deň) aj pohlavne zrelých (45. deň) medúz.
U mladých medúz boli EdU-pozitívne bunky zistené v veľkom počte po celom tele, vrátane zástavy, manubria (podporný orgán ústnej dutiny u medúz) a chapadiel, bez ohľadu na čas expozície EdU (1D–1K a 1N–1O, EdU: 20 µM (mikromolár) po 24 hodinách).
V manubriu bolo zistené pomerne málo EdU-pozitívnych buniek (1F a 1G), zatiaľ čo v zástave bolo ich rozdelenie veľmi rovnomerné, najmä vo vonkajšej vrstve zástavy (exumbrella, 1H—1K). V chapadlách boli EdU-pozitívne bunky silne zhlukované (1N). Použitie mitotického markera (protilátky PH3) umožnilo potvrdiť, že EdU-pozitívne bunky sú skutočne proliferujúce bunky. PH3-pozitívne bunky boli zistené ako v dáždnike, tak aj v cibuli chapadla (1L a 1P).
V chapadlách boli mitotické bunky prevažne zistené v ektoderm (1P), zatiaľ čo v dáždnike sa proliferujúce bunky nachádzali v povrchovej vrstve (1M).
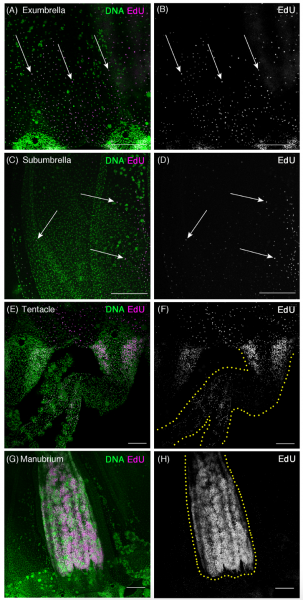
Obrázok č. 2: zvláštnosti bunkovej proliferácie u dospelých Cladonema.
Rovnaké ako u mladých jedincov, aj u dospelých boli EdU-pozitívne bunky vo veľkom počte zistené po celom tele. V dáždnike boli EdU-pozitívne bunky častejšie v povrchovej vrstve než v dolnej, čo je podobné pozorovaniam u mladých jedincov (2A—2D).
A v chapadlách bola situácia trochu iná. EdU-pozitívne bunky sa hromadili pri základe chapadla (cibuli), kde boli zistené dva klastry na oboch stranách cibule (2E a 2F). U mladých jedincov sa podobné hromadenia tiež pozorovali (1N), t.j. cibule chapadiel môžu byť hlavným oblastom proliferácie po celú jellovú fázu. Zaujímavé je, že v manubriu dospelých jedincov bolo výrazne viac EdU-pozitívnych buniek ako u mladých (2G a 2H).
Medzi konečnými výsledkami je, že proliferácia buniek môže prebiehať rovnomerne v dáždnike medúzy, zatiaľ čo v chapadlách je tento proces veľmi lokalizovaný. Preto sa môže predpokladať, že rovnomerná proliferácia buniek môže kontrolovať rast tela a homeostázu tkanív, zatiaľ čo hromadenia proliferujúcich buniek pri cibuliach chapadiel sa podieľajú na morfogenéze chapadiel.
Z hľadiska vývoja tela ako takého, proliferácia zohráva dôležitú úlohu v raste tela.
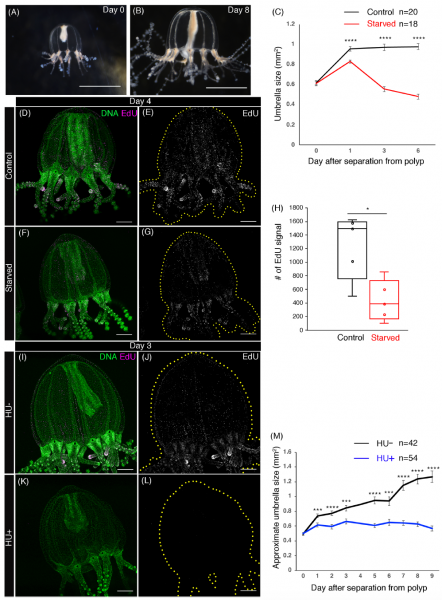
Obrázok č. 3: dôležitosť proliferácie v procese rastu tela medúzy.
Aby to vedci overili v praxi, sledovali rast tela medúz, počínajúc mladými jedincami. Určiť veľkosti tela medúzy je najľahšie podľa jej kupoly, pretože rastie rovnomerne a priamo úmerne celému telu.
Pri normálnom kŕmení v laboratórnych podmienkach sa veľkosť kupoly prudko zvýšila o 54,8% počas prvých 24 hodín — z 0,62 ± 0,02 mm2 na 0,96 ± 0,02 mm2. Počas nasledujúcich 5 dní pozorovania sa veľkosť pomaly a plynule zvyšovala na 0,98 ± 0,03 mm2 (3A—3C).
Medúzy z inej skupiny, ktoré boli zbavené potravy, nerástli, ale zmenšovali sa (červená línia na grafe 3C). Analýza buniek hladujúcich medúz ukázala prítomnosť veľmi malého počtu EdU buniek: 1240,6 ± 214,3 u medúz z kontrolnej skupiny a 433,6 ± 133 u hladujúcich (3D—3H). Toto pozorovanie môže byť priamym dôkazom toho, že výživa priamo ovplyvňuje proces proliferačného rastu.
Aby vedci overili túto hypotézu, uskutočnili farmakologickú analýzu, počas ktorej blokovali progresiu bunkového cyklu pomocou hydroxikarbamidu (CH4N2O2) — inhibítora bunkového cyklu, ktorý spôsobuje zastavenie G1. V dôsledku tohto zásahu S-fázové bunky, ktoré boli predtým zistené pomocou EdU, zmizli (3I—3L). Takže medúzy, ktoré boli vystavené CH4N2O2, neprejavili rast tela, na rozdiel od kontrolnej skupiny (3M).
Ďalším krokom výskumu bolo podrobné skúmanie rozvetvených chapadiel medúz, aby sa potvrdilo predpoklad, že lokálna proliferácia buniek v chapadlách prispieva k ich morfogenéze.
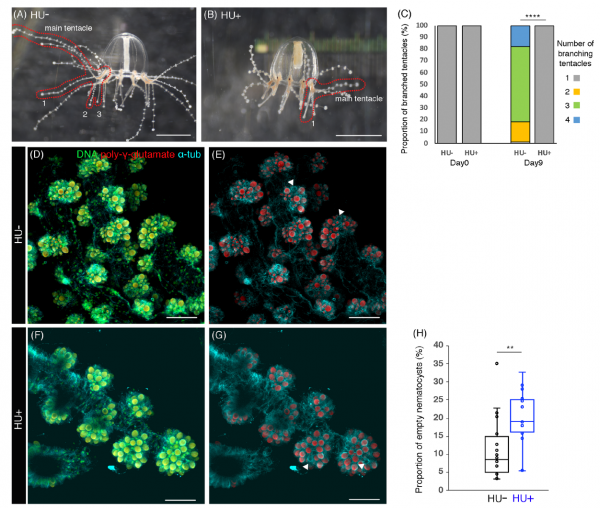
Obrázok č. 4: vplyv lokálnej proliferácie na rast a rozvetvenie chapadiel medúz.
Chapadlá mladých medúz majú jednu vetvu, ale časom sa ich počet zvyšuje. V laboratórnych podmienkach sa rozvetvenie zvýšilo 3-krát na deviaty deň pozorovaní (4A a 4C).
Opäť, pri použití CH4N2O2 sa rozvetvenie chapadiel nepozorovalo, bola prítomná iba jedna vetva (4B a 4C). Zaujímavé je, že odstránenie CH4N2O2 z tela medúz obnovilo proces rozvetvenia chapadiel, čo naznačuje reversibilitu farmakologického zásahu. Tieto pozorovania jasne naznačujú dôležitosť proliferácie pre vývoj chapadiel.
Medúzy by neboli medúzami bez nematocitov (kniodocyt, t.j. žihľavé bunky). U medúzy druhu Clytia hemisphaerica kmeňové bunky v cibuľkách chapadiel dodávajú nematocysty na končeky chapadiel práve prostredníctvom proliferácie buniek. Samozrejme, vedci sa rozhodli overiť aj toto tvrdenie.
Na zistenie akéhokoľvek spojenia medzi nematocystami a proliferáciou bol použitý farbiaci jadrový farbivo, ktoré môže označovať poly-γ-glutamát, syntetizovaný v stene nematocysty (DAPI, t.j. 4’,6-diamidino-2-fenylindol).
Farbenie poly-γ-glutamátu umožnilo oceniť veľkosť nematocitov, ktorá sa pohybovala od 2 do 110 µm² (4D—4G). Tiež bolo zistené určité množstvo prázdnych nematocitov, čo znamená, že takéto nematocity boli vyčerpané (4D—4G).
Aktivita proliferácie v chapadlách medúz bola overená štúdiom prázdnoty v nematocitoch po blokovaní bunkového cyklu pomocou CH4N2O2. Podiel prázdnych nematocitov u medúz po farmakologickej intervencii bol vyšší ako u kontrolnej skupiny: 11,4 % ± 2,0 % u medúz z kontrolnej skupiny a 19,7 % ± 2,0 % u medúz s CH4N2O2 (4D—4G a 4H). Preto, aj po vyčerpaní, nematocity naďalej aktívne zabezpečujú bunkami-predchodcami proliferáciu, čo potvrdzuje vplyv tohto procesu nielen na vývoj chapadiel, ale aj na nematogenézu v nich.
Najzaujímavejším bol však krok skúmania regeneračných schopností medúz. Zohľadňujúc vysokú koncentráciu proliferatívnych buniek v cibuľke chapadla u dospelých medúz, Cladonema, vedci sa rozhodli skúmať regeneráciu práve chapadiel.
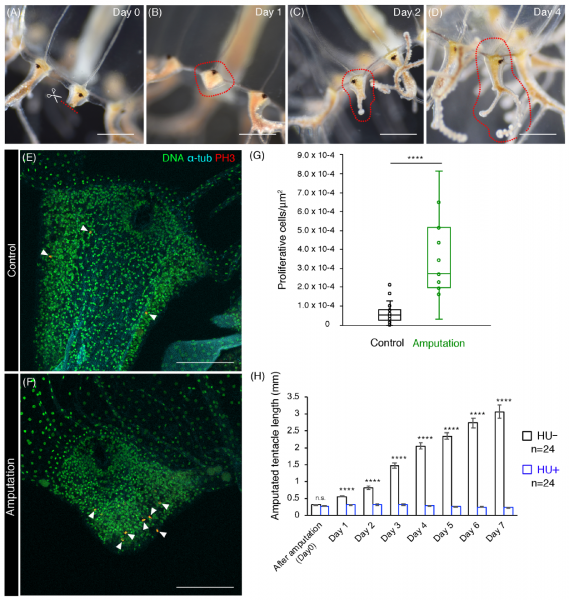
Obrázok č. 5: vplyv proliferácie na regeneráciu chapadiel.
Po vykonaní disekčne chapadiel pri základe bol pozorovaný proces regenerácie (5A–5D). V priebehu prvých 24 hodín prebiehalo hojenie v oblasti rezu (5B). Na druhý deň pozorovania sa koniec začal predlžovať a objavili sa rozvetvenia (5C). Na piaty deň bolo chapadlo úplne rozvetvené (5D), takže regenerácia chapadla môže sledovať normálny morfogenézu chapadla po predĺžení.
Aby odborníci lepšie preskúmali počiatočnú fázu regenerácie, analyzovali rozloženie proliferujúcich buniek s využitím farbenia PH3 na vizualizáciu mitotických buniek.
Zatiaľ čo deliteľné bunky boli často pozorované v blízkosti amputovanej oblasti, mitotické bunky boli dispergované v nepoškodených kontrolných cibuliach s chapadlami (5E a 5F).
Kvantitatívne hodnotenie PH3-pozitívnych buniek prítomných v cibuľkách chapadiel umožnilo zistiť významné zvýšenie PH3-pozitívnych buniek v cibuľkách chapadiel u jedincov s amputovanými končatinami v porovnaní s kontrolnou skupinou (5G). Ako záver, počiatočné regeneračné procesy sú sprevádzané aktívnym nárastom proliferácie buniek v cibuľkách chapadiel.
Skontrolovať vplyv proliferácie na regeneráciu umožnilo blokovanie buniek pomocou CH4N2O2 po odrezaní chapadla. U kontrolnej skupiny sa predĺženie chapadla po jeho amputácii dialo normálne, ako sa očakávalo. Naproti tomu u skupiny, na ktorej bol aplikovaný CH4N2O2, predĺženie nenastalo, aj keď došlo k normálnemu hojení rany (5H). Inými slovami, hojenie bude prebiehať v každom prípade, ale pre správnu regeneráciu chapadla je potrebná proliferácia.
Na záver sa vedci rozhodli preskúmať proliferáciu u iných druhov medúz, konkrétne u Cytaeis a Rathkea.
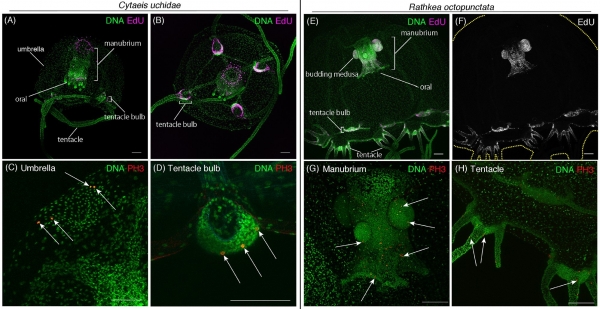
Obrázok č. 6: porovnanie proliferácie u medúz druhu Cytaeis (vľavo) a Rathkea (vpravo).
U Cytaeis medúzy EdU-pozitívne bunky boli pozorované v manubriu, baňkách chapadiel a v hornej časti dáždnika (6A a 6B). Umiestnenie zistených PH3-pozitívnych buniek u Cytaeis je veľmi podobné Cladonema, avšak existujú určité rozdiely (6C a 6D). Naproti tomu u Rathkea EdU-pozitívne a PH3-pozitívne bunky boli zistené takmer výlučne v oblasti manubria a baňkách chapadiel (6E—6H).
Zaujímavé je tiež, že proliferujúce bunky sa často zisťovali v obličkách medúzy Rathkea (6E—6G), čo odráža bezpohlavný typ rozmnožovania tohto druhu.
S ohľadom na získané informácie môžeme predpokladať, že proliferácia buniek prebieha v baňkách chapadiel rozhodne nielen u jedného druhu medúz, hoci existujú aj rozdiely dané odlišnosťou vo fyziológii a morfológii.
Pre podrobnejšie oboznámenie s nuansami výskumu odporúčam pozrieť sa do .
Epilog
Jednou z mojich najobľúbenejších literárnych postáv je Hercule Poirot. Priezračný detektív vždy venoval osobitnú pozornosť drobným detailom, ktoré iným pripadali nepodstatné. Vedci v mnohom pripomínajú detektívske postavy, ktoré zhromažďujú všetky stopy, aké len môžu nájsť, aby odpovedali na všetky otázky vyšetrovania a vypátrali "vinníka".
Ako by to mohlo znieť očividne, regenerácia buniek medúz je priamo spojená s proliferáciou — neoddeliteľným procesom vo vývoji buniek, tkanív a, ako následok, celého organizmu. Podrobnejšie štúdium tohto komplexného procesu nám umožní lepšie porozumieť molekulárnym mechanizmom, ktoré sú jeho základom, čo nám zase umožní rozšíriť nielen spektrum našich vedomostí, ale aj priamo ovplyvniť náš život.
Petkov offtop:
Pochod medúz druhu aurelija, narušený predátorom s nezvyčajným názvom „fried egg jellyfish“, teda medúza-omeleta (Planéta Zem, rozpráva David Attenborough).

Nie je to medúza, ale tohto hlbokomorského tvora (pelikánovitý veľkopľúcnik) sa nepodarilo zachytiť tak často (reakcia vedcov je jednoducho rozkošná).
Ďakujem za pozornosť, zostaňte zvedaví a prajem všetkým skvelý víkend, kamaráti! 🙂
Ďakujeme, že ostávate s nami. Páčia sa vám naše články? Chcete vidieť viac zaujímavých materiálov? Podporte nás, vytvorením objednávky alebo odporúčaním známym, 30% zľava pre používateľov Chabra na unikátny ekvivalent entry-level serverov, ktorý sme pre vás vytvorili: (k dispozícii varianty s RAID1 a RAID10, až 24 jadier a až 40GB DDR4).
Dell R730xd za polovicu? Len u nás v Holandsku! Dell R420 — 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB — od 99 dolárov! Prečítajte si o tom
Zdroj: habr.com
